



1.2.2. Строение и деление клетки эукариотических водорослей (Е. Л. Кордюм)
(Форма, размеры и типы клеток эукариотических водорослей приведены при описании конкретных таксонов.)
Строение клетки
Клеточные покровы эукариотических водорослей, обеспечивающие резистентность содержимого клеток - протопластов к внешним воздействиям и придающие клеткам определенную форму, чрезвычайно разнообразны го структуре (рис. 1.15) и химическому составу. У большинства эукариотических водорослей независимо от морфологического типа структуры слоевища (монадный, гемимонадный, коккоидный, нитчатый, разнонитчатый, сифональный, паренхиматозный и др.) клетки окружены прочной полисахаридной оболочкой, проницаемой для воды и растворенных в ней низкомолекулярных веществ и легко пропускающей солнечный свет. Кроме полисахаридов в состав оболочки входят белки, гликопротеиды, минеральные соли, пигменты, липиды, вода. Повышение содержания воды в клеточной оболочке увеличивает ее проницаемость. В отличие от высших растений клеточные оболочки водорослей не содержат лигнина. Основным скелетным веществом оболочек клеток водорослей, как и высших растений, является целлюлоза, в химическом отношении представляющая собой β-1,4-D-глюкан. У некоторых водорослей микрофибриллы состоят из β-1,4-маннанов (семейства Codiaceae, Dasycladaceae, Derbesiaceae отдела Chlorophyta) или β-1,3-ксиланов (семейства Bryopsidaceae, Caulerpaceae, Udotaceae, Dichotomosiphonaceae отдела Chlorophyta; виды родов Porphyra Ag. и Bangia Lingb. отдела Rhodophyta).
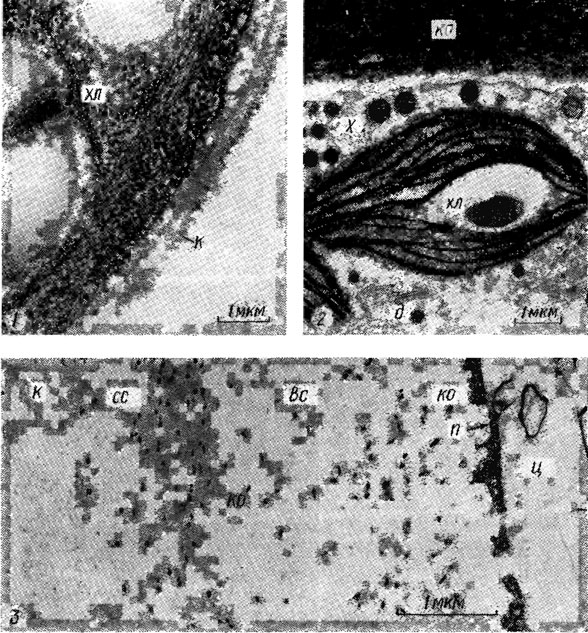
Рис. 1.15. Электронная микрофотография фрагментов клеток Chlorella vulgaris Beijer. (a), Chara vulgaris Vaill. (2) и клеточной оболочки Gracilaria verrucosa (Huds.) Papenf. (3): хл - хлоропласт; к - кутикула; ко - клеточная оболочка; х - харасома; сс - средний слой оболочки; вс - внутренний слой оболочки; п - плазмалемма, ц - цитоплазма; д - диктиосома
Нитчатые молекулы целлюлозы собраны в оболочках в структурные единицы, которые получили название микрофибрилл, составляющих каркас оболочки. Микрофибрилла состоит из нескольких десятков или сотен молекул целлюлозы, располагающихся параллельно друг другу по ее длине. Различают центральную кристаллическую часть микрофибриллы, в которой молекулы целлюлозы расположены в трехмерном пространстве так упорядочение что образуют кристаллическую решетку, и наружную - паракристаллическую. Длина микрофибрилл может достигать нескольких микрон. В поперечном разрезе микрофибрилла обычно имеет овальную форму. У отдельных видов Cladophorales и Siphonales длина большой и малой осей поперечного среза микрофибрилл составляет 18,5 и 11,5 нм, а их кристаллической части - 17 и 11 нм соответственно. На поперечном срезе кристаллической части насчитывается 500 молекул целлюлозы.
Микрофибриллы погружены в не имеющий кристаллической структуры матрикс - сложную смесь полимеров, среди которых преобладают полисахариды с различной молекулярной массой: глюкоза, галактоза, арабиноза, ксилоза, рамноза, манноза, фу коза, а также глюкуроновая и галактуроновая кислоты и др. Макромолекулы матрикса образуют гликозидные, ковалентные, водородные связи друг с другом и с микрофибриллами, что значительно повышает прочность оболочки.
Основную роль в образовании оболочки играют аппарат Гольджи и плазмалемма, которые содержат ферментные комплексы, участвующие в биосинтезе полисахаридов. Синтез полисахаридов матрикса оболочки (из Сахаров) начинается в цистернах диктиосом, совокупность которых и составляет аппарат Гольджи, и продолжается в пузырьках Гольджи после их отчленения от края цистерны и во время движения к плазмалемме. После встраивания мембран пузырьков Гольджи в плазмалемму их содержимое с полисахаридами и гликопротеидами матрикса изливается в оболочку.
Согласно современным представлениям микрофибриллы целлюлозы синтезируются на наружной поверхности плазмалеммы с помощью белковых терминальных комплексов двух типов - линейных и в виде розеток. Белковые терминальные комплексы встроены в плазмалемму и движутся в ее плоскости, оставляя после себя готовую микрофибриллу. Они содержат фермент целлюлозосинтетазу, катализирующий синтез целлюлозы. Образование и ориентация микрофибрилл в оболочке происходят одновременно; оба эти процесса контролируются протопластом. Линейные терминальные комплексы в плазмалемме описаны у некоторых видов водорослей (например, виды родов Oocystis Näg., Glaucocystis Itzigs., Boodlea Mur., Chaetomorha Kütz., а также Valonia macrophysa Kütz.), для которых характерны микрофибриллы относительно большого диаметра и высокой кристалличности (рис. 1.16, 1). Количество субъединиц в этих комплексах соответствует числу глюкановых цепочек в микрофибриллах. Терминальные комплексы в виде розеток, состоящих из 6 гранул размером 8 им, с центральной глобулой, обнаружены в плазмалемме у видов родов Micrasterias Ag., Closterium Nitzsch. и Spirogyra Lynk (рис. 1.16, 2, 3). Подобного рода розетки выявлены и на сколе мембран пузырьков Гольджи. Предполагают, что здесь происходит сборка розеток, которые находятся в неактивном состоянии до тех пор, пока не произойдет встраивание мембраны пузырьков в плазмалемму при экзоцитозе.
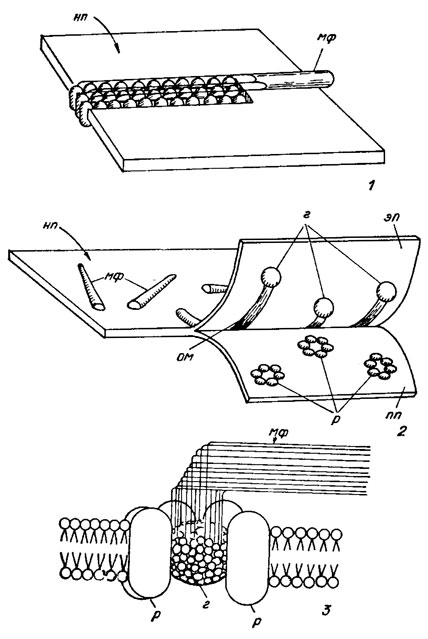
Рис. 1.16. Схемы линейного терминального комплекса (1) и терминального комплекса в виде розеток (2); схема соединения глобула - розетка (3); нп - наружная поверхность плазмалеммы; мф - микрофибрилла; г - глобула; эп - экзоплазм этическая поверхность скола; ом - отпечаток микрофибриллы; пп - протоплазм этическая поверхность скола, р - розетка
Толщина и количество слоев оболочки клеток водорослей неодинаковы у разных видов. В большинстве случаев оболочка состоит из 2-3, реже 4 и более слоев. Толщина оболочки варьирует также в зависимости от возраста и состояния клеток, условий выращивания. Микрофибриллы целлюлозы по-разному ориентированы в различных слоях клеточной оболочки. Так, в первом слое оболочки сифоновой водоросли из рода Valonia, образующемся вокруг голой апланоспоры, редкие микрофибриллы целлюлозы расположены беспорядочно. В последующих слоях оболочки уже зрелого пузырька, прикрепленного к субстрату базальными ризоидами, описаны три типа спиральной ориентации микрофибрилл целлюлозы - две левовращающие спирали, составляющие углы в 80 и 10° с большой осью пузырька, и правовращающая спираль, которая делит пополам угол между двумя спиралями (рис. 1.17). Все спирали идут от одного полюса пузырька к другому.
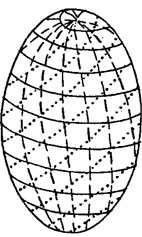
Рис. 1.17. Типы спиральной ориентации микрофибрилл в клеточной оболочке Valonia ventricosa
Оболочка клеток водорослей пронизана порами, размеры которых колеблются в значительных пределах - от 12 до 60 и даже 90 нм. Через поры осуществляется связь протопласта с внешней средой у одноклеточных водорослей, у многоклеточных - также и с соседними клетками слоевища с помощью плазмодесм, которые возникают в процессе цитокинеза и представляют каналы диаметром 25-80 нм, выстланные плазмалеммой, непрерывной с плазмалеммой смежных клеток. В центре плазмодесмы обычно проходит трубка (десмотрубка), стенки которой непрерывны с мембранами эндоплазматического ретикулюма обеих клеток. После завершения цитокинеза путем локального ферментативного лизиса отдельных микроскопических участков внешней оболочки клетки образуются вторичные поры.
У многих водорослей клеточные оболочки пропитываются солями железа (некоторые вольвоксовые и красные водоросли), кальция (представители харовых, зеленых, бурых и красных водорослей), кремния (многие золотистые, желтозеленые, бурые и диатомовые водоросли). У последних соли создают разнообразную архитектонику поверхностных слоев - своеобразный кремниевый панцирь.
Дополнительный твердый покров - кутикула - на поверхности оболочки ряда видов зеленых, красных и бурых водорослей (например, Oedogonium Link, Caulerpa Lamour., Halimeda Lamour., Udotea Lamour., Porphyra Ag.) образуется за счет выделяемого клеткой кутина. Кутикула может быть гомогенной, электронно-плотной, 20-50 нм толщиной, или слоистой. Так, у видов родов Aurainvillea и Cladocephalus (Siphonophyceae) кутикула толщиной 16-20 нм состоит из трех слоев: двух электронно-плотных (наружного и внутреннего по 4-5 нм толщиной) и среднего, менее электронно-плотного, аморфного, слоя.
Поверхность оболочки может быть также покрыта слоем спорополленина - продукта полимеризации каротиноидов, устойчивого к воздействию ферментов, кислот и щелочей (некоторые виды рода Chlorella Beijer. и др.).
Мощные слоистые чехлы, состоящие из специфических полисахаридов, в частности сульфатированных полисахаридов, пектинов, фукоидина, характерны для многих бурых, красных и зеленых водорослей.
Образование слизистых капсул вокруг клеток из секретируемой клетками слизи отмечено у Volvocales и Chlorococcales, нередко представленных колониальными формами. В неблагоприятных условиях некоторые водоросли (например, Chlamydomonas Ehr.) переходят временно в пальмеллевидное состояние. При этом их клеточные оболочки вследствие гидратации матрикса ослизняются и слипаются, что приводит к образованию больших клеточных скоплений.
У ряда видов водорослей целлюлозная оболочка отсутствует и клеточные покровы представлены преимущественно белковыми слоями - пелликулой, перипластом, текой, располагающимися под плазма леммой, реже над ней. Структура слоев варьирует у водорослей различных отделов. Так, пелликула эвгленовых водорослей - плотный, эластичный слой протопласта толщиной до 70 нм, состоящий приблизительно из 20 полипептидов и тесно прилегающий к плазмалемме. Поверхность таких клеток продольно-ребристая, причем ребра начинаются от глотки и по спирали огибают всю клетку или располагаются более или менее параллельно длинной оси клетки (рис. 1.18, 1). На поперечном срезе ребра клетки имеют вид гребней с крючковатым изгибом, перемежающихся с глубокими бороздами (рис. 1.18, 2-5). В основании изгиба находится электронно-плотный морфогенетический центр, ассоциированный с микротрубочками. Делению клетки предшествует удвоение полос, начинающееся с удвоения морфогенетического центра.
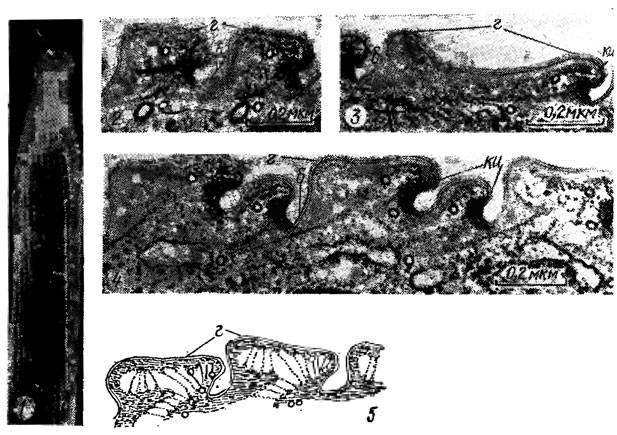
Рис. 1.18. Электронная микрофотография клетки Cyclidiopsis acus Kors., не имеющей целлюлозной оболочки (1), и срезов верхней и средней частей этой клетки (2-4); схема участка пелликулы верхней части клетки (5); г - гребень; б - борозда; ки - крючковидный изгиб
Клеточный покров криптофитовых водорослей - перипласт - состоит из внутреннего белкового компонента и дополнительного внешнего, располагающегося над плазма леммой. Внутренние и внешние пластинчатые структуры одинакового размера и толщины тесно прилегают к плазмалемме. Прямоугольные или шестиугольные пластинки собраны в четкие ряды; пузырьки, содержащие эджективные (стрекательные) органеллы - эджектосомы обычно располагаются в углах пластинок. Поверхность клеток покрыта семиугольными чешуйками; каждая чешуйка диаметром 120-140 нм состоит из центральной оси, от которой к периферии из переплетенного фибриллярного материала отходит 7 полосок. Кроме чешуек, на поверхности клеток наблюдаются отдельные фибриллы 10 нм шириной и до 1,5 мкм длиной (рис. 1.19, 1-4). Перипласт пронизан порами.
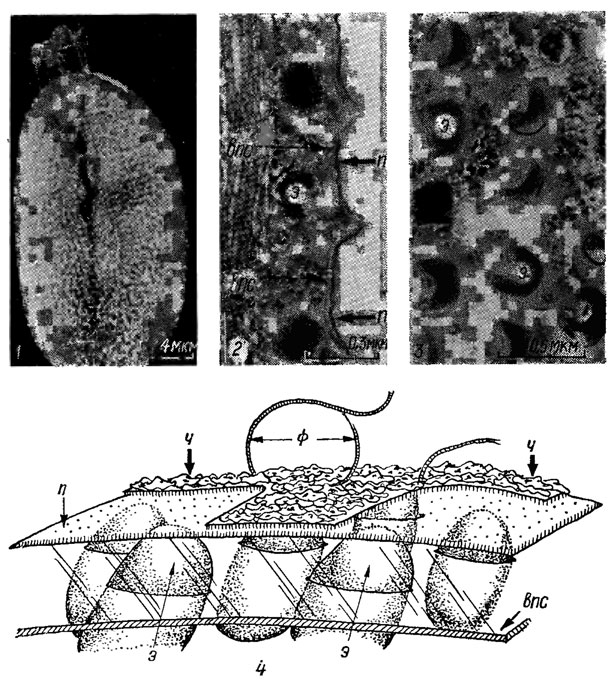
Рис. 1.19. Электронная микрофотография клетки криптофитовой водоросли Cryptomonas cryophila (1) и ее фрагментов (2-3); схема участка перипласта (4): п - плазмалемма; э - эджектосома; впс - внутренняя пластинчатая структура перипласта: ч - чешуйка; ф - фибрилла
Тека динофитовых водорослей, кроме белков, содержит галактозу, арабинозу и галактуроновую кислоту и является многокомпонентной системой. Основной элемент теки - уплощенные пузырьки длиной от 600-800 нм до 0,8-1,2 мкм и толщиной 60-170 нм; они располагаются непосредственно под плазмалеммой и окружены мембраной; их число может варьировать от 2 на клетку до нескольких сотен. Пузырьки заполнены зернистым веществом или содержат одиночные пластинки, которые по структуре и величине весьма разнообразны у разных видов динофитовых водорослей и часто срастаются своими краями, образуя прочный панцирь. К мембране пузырьков со стороны протопласта могут прилегать дополнительные структуры в виде пробок шириной 200 нм с неоднородным содержимым (рис. 1.20, 1, 2). Поверхность клеток различается по текстуре; у ряда видов образуются шипы длиною до 600 нм. Тека пронизана порами.
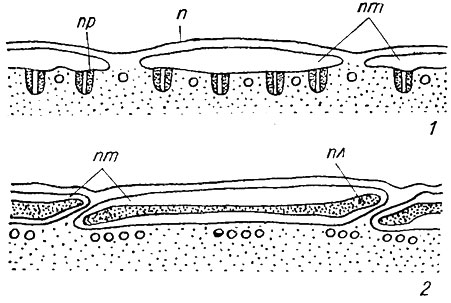
Рис. 1.20. Схема участков теки видов родов Gymnodinium Stein (1) и Glenodinium (Ehr.) Stein (2): пр - пробка; п - плазмалемма; пт - пузырьки трихоциста; пл - пластинка
Эджективные органеллы динофитовых водорослей - трихоцисты - имеют более сложное строение, чем эджектосомы криптофитовых. В одной клетке может находиться несколько сотен трихоцист. Они окружены мембраной и состоят из паракристаллического тела и более узкой фиброзной части. Зрелые трихоцисты обычно располагаются по периферии клетки под порами и при раздражении выстреливают наружу через пору длинную поперечно исчерченную нить ромбовидной или четырехугольной формы, 60-180 нм шириной.
У некоторых видов динофитовых типичные трихоцисты отсутствуют, а выполняющие аналогичную функцию, но отличающиеся по строению органеллы называют рабдосомами (рис. 1.21, 1). Они состоят из цилиндрической структуры, погруженной в свободный футляр различных размеров. Передний конец цилиндрической структуры несколько заострен, около 4 мкм в длину и 150-200 нм в ширину, задний конец округлен. Цилиндрическая структура может быть заполнена аморфным веществом (рис. 1.21, 2) либо содержит несколько продольных элементов и аморфное вещество (рис. 1.21, 3) или состоит из 8 нитей 30 нм толщиной, свободно переплетающихся между собой (рис. 1.21, 4).
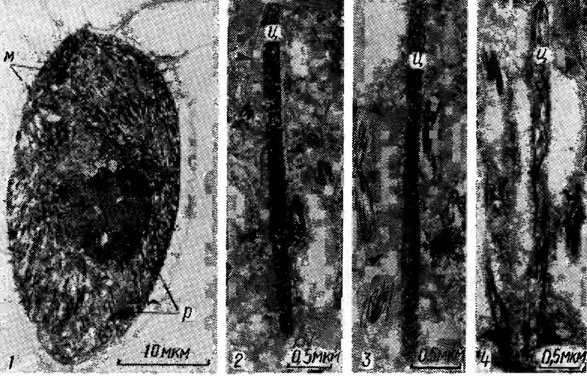
Рис. 1.21. Электронная микрофотография клетки Dinophysis acuminata Clap et Lachm. (1) и ее фрагментов (2-4): м - мукоциста; р - рабдосома; ц - цилиндрическая структура (стрелками указаны границы футляра)
Эджективные органеллы, выполняющие скорее всего защитную функцию, известны также у золотистых (здесь они называются дискоболоцистами), зеленых и эвгленовых водорослей.
Поверхность клеток многих водорослей, особенно одноклеточных, покрыта, как уже отмечалось, чешуйками, а также шипиками и щетинками. Последние представляют собой более тонкие и длинные, до 200 мкм, выросты по сравнению с короткими и толстыми шипиками. Эти дополнительные структуры выполняют разнообразные функции. У одноклеточных образование щетинок и шипиков скорее всего является приспособлением к планктонному образу жизни.
У незначительного числа видов золотистых и зеленых водорослей клеточные покровы не формируются, и самым внешним слоем клеток является плазмалемма. Снаружи эти, т. н. голые клетки большей частью покрыты слизью. В искусственных условиях получены мутантные формы Chlamydomonas reinhardtii Dang., лишенные клеточной оболочки, которые интенсивно растут в культуре. Кратковременное отсутствие клеточных покровов характерно для гамет и зооспор одноклеточных и многоклеточных водорослей, для первых - от момента образования до осуществления процесса оплодотворения, для вторых - до формирования клеточных покровов.
Движение жгутиковых форм, зооспор и гамет неклеточных (сифоновых) и многоклеточных водорослей осуществляется в подавляющем большинстве случаев с помощью жгутикового аппарата - сложной системы, состоящей из собственно жгутиков (ундулиподий), базальных тел (кинетосом) и корней жгутиков (рис. 1.22). Жгутики водорослей, так же как и реснички простейших, способны совершать ритмические волнообразные движения (по ним обычно пробегают квазисинусоидальные волны); на этой основе жгутики и реснички объединяют под общим названием ундулиподий. Термин ундулиподия в переводе с латинского означает "волноножка". Среди водорослей чаще всего встречаются 1- и 2-жгутиковые формы, реже 3-, 4- и 8-жгутиковые; у зооспор Oedogonium Link, Derbesia Sol., Vaucheria D. С. число жгутиков достигает нескольких десятков.
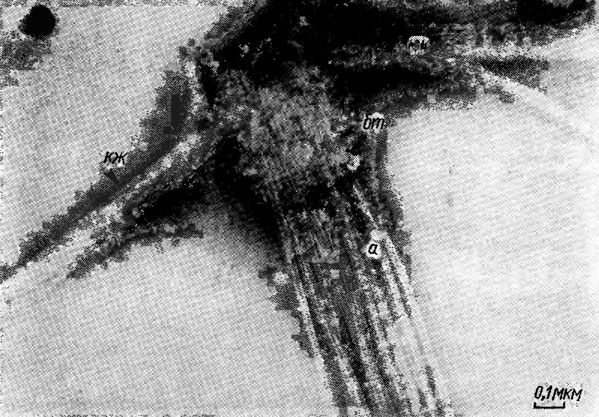
Рис. 1.22. Электронная микрофотография изолированного жгутикового аппарата Dunaliella bioculata Butch.: кж - корень жгутика; бт - базальное тело; а - аксонема
По соотношению длины жгутиков в пределах одной клетки водоросли разделяют на две группы - равножгутиковые и разножгутиковые. У последних жгутики часто занимают неодинаковое положение по отношению к клетке и имеют различия в частоте и интенсивности биений - длинный жгутик направлен вперед и работает энергичнее, чем короткий, который обращен в сторону или назад по ходу движения клетки.
Основные черты внутреннего строения жгутиков и базальных тел вегетативных клеток жгутиковых форм, зооспор и гамет сходны. Жгутик окружен мембраной, которая является продолжением плазма леммы клетки. Внутри жгутика находится матрикс, аналогичный матриксу клетки - гиалоплазме, и аксонема - осевая структура, изгибанием которой и обусловлено биение жгутика. Аксонема представляет собой сложный комплекс микротрубочек (внутренний диаметр 25 нм), образованных белком тубулином, и связанных с ними других белков. Тубулин является димером и образован двумя полипептидами - α- и β-тубулином, которые весьма сходны по аминокислотной последовательности. При формировании микротрубочек молекулы тубулина соединяются друг с другом в протофиламенты - нитевидные комплексы, в которых α-тубулин одного димера связан с β-тубулином следующего. Обычно 13 таких протофиламентов, расположенных параллельно и прилегающих друг к другу, образуют цилиндрическую структуру - собственно микротрубочку. Так как тубулиновые полипептиды в соседних протофиламентах несколько смещены относительно друг друга, то в стенке цилиндра они образуют регулярно чередующиеся спиральные ряды (рис. 1.23, 1).
Аксонема состоит из 9 пар периферических микротрубочек и 2 центральных (рис. 1.23, 2; 1.24). Структура "9 + 2" характерна для жгутиков и ресничек почти всех эукариотических организмов, хотя имеются и отклонения. Центральная пара микротрубочек заключена в центральную капсулу, образованную тонкими загнутыми белковыми отростками, прикрепленными к микротрубочкам. Периферические микротрубочки дуплетов несколько различаются по своей структуре - одна из них полная (субфибрилла А) построена из 13 субъединиц, вторая - неполная (субфибрилла В) - только из 10. Субфибрилла А по всей длине несет динеиновые "ручки" - короткие боковые выступы, отходящие от субфибриллы А каждого дуплета по направлению к соседнему с интервалами 24 нм и состоящие из белка динеина. Динеиновые "ручки" необходимы для изгибания жгутиков, которое обусловлено АТФ-зависимым скольжением микротрубочек аксонемы. Динеин состоит из многих полипептидов и сам по себе действует как АТФаза. Каждая диненновая "ручка" развивает примерно такое же усилие, как одна молекула миозина в сокращающейся мышце. Сила прикладывается к соседнему дуплету микротрубочек, с которым контактируют "ручки", и стремится сдвинуть его по направлению к кончику жгутика.
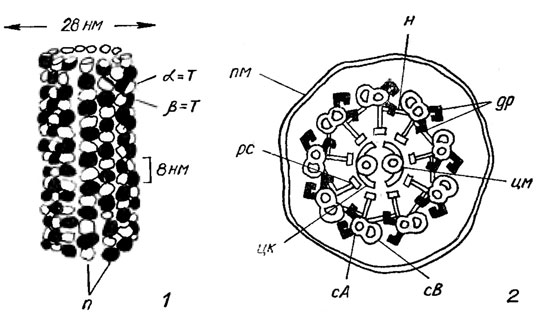
Рис. 1.23. Схема строения микротрубочки (1) и поперечного среза жгутика Chlamydomonas (2): α-m, β-m - α и β - тубулин; m - протофиламенты: н - нексин; др - динеиновые 'ручки'; цм - центральная микротрубочка; сА и сВ - субфибриллы А и В, образующие периферический дуплет , цк - центральная капсула; рс - радиальная спица, пм - плазматическая мембрана
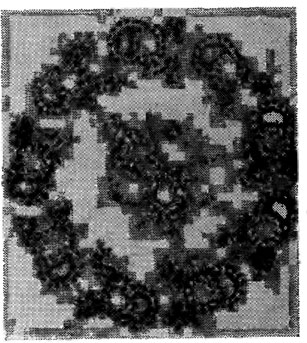
Рис. 1.24. Электронная микрофотография поперечного среза жгутика Chlamydomonas sp
Поперечные эластичные связи между соседними дуплетами микротрубочек образованы белком нексином, благодаря чему аксонема по окружности оказывается как бы скрепленной обручем. От каждого дуплета внутрь аксонемы отходят радиальная "спица", заканчивающаяся глобулярным образованием в непосредственной близости от центральной капсулы (см. рис. 1.23, 2), которая, по-видимому, способствует выполнению центральными микротрубочками регуляторной функции при движении аксонемы.
Поверхность жгутиков может быть гладкой или опушенной за счет латеральных выростов, или мастигонем, длиной 2-3 мкм, имеющих вид тонких волосков, диаметр которых варьирует у разных видов водорослей от 5 (Pedinomonas Korsch.) до 17-19 (Fucus L. и Ascophyllum Stack.) и даже до 25 нм (некоторые желто-зеленые водоросли). Число рядов, длина мастигонем и их расположение могут различаться у жгутиков одной клетки. Как правило, у равножгутиковых водорослей оба жгутика опушены; у разножгутиковых опушен преимущественно двигательный, передний, жгутик (рис. 1.25). У некоторых зеленых и бурых жгутик оканчивается тонким бичеподобным выростом - акронемой. Поверхность жгутиков у ряда видов зеленых, золотистых и бурых водорослей покрыта плотными неминерализованными чешуйками различной формы: пластинчатой, дисковидной, кольцевидной, булавовидной и др. Жгутиковые чешуйки, как и чешуйки клеточных покровов, образуются в пузырьках аппарата Гольджи, транспортируются к периферии жгутика и затем выводятся на его поверхность.
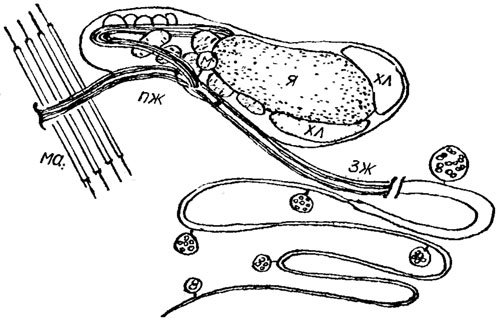
Рис. 1.25. Схема строения спермия Laminaria Lam.: ма - мастигонема; пою - передний жгутик; м - митохондрия; я - ядро; хл - хлоропласт; зж - задний жгутик
Базальные тела, или кинетосомы, жгутиков идентичны по своей структуре центриолям и во многих случаях могут превращаться друг в друга. Центриоли обычно представлены парами, члены которых расположены под прямым углом друг к другу (рис. 1.26, 1). Каждая центриоль состоит из 9 триплетов микротрубочек (рис. 1.26, 2, 3). Новая пара центриолей образуется по соседству с уже существующей, и этот процесс протекает сходным образом у всех эукариотических организмов. Одной из основных функций центриоли (а согласно крайней точке зрения - единственной) является образование жгутиков. Например, у Chlamydomonas reinhardtii Dang, в начале митоза жгутики исчезают, а базальные тела перемещаются в глубь клетки, ближе к ядру, где служат центрами организации митотического веретена деления. По окончании митоза центриоли снова становятся базальными телами, от которых отрастают жгутики.
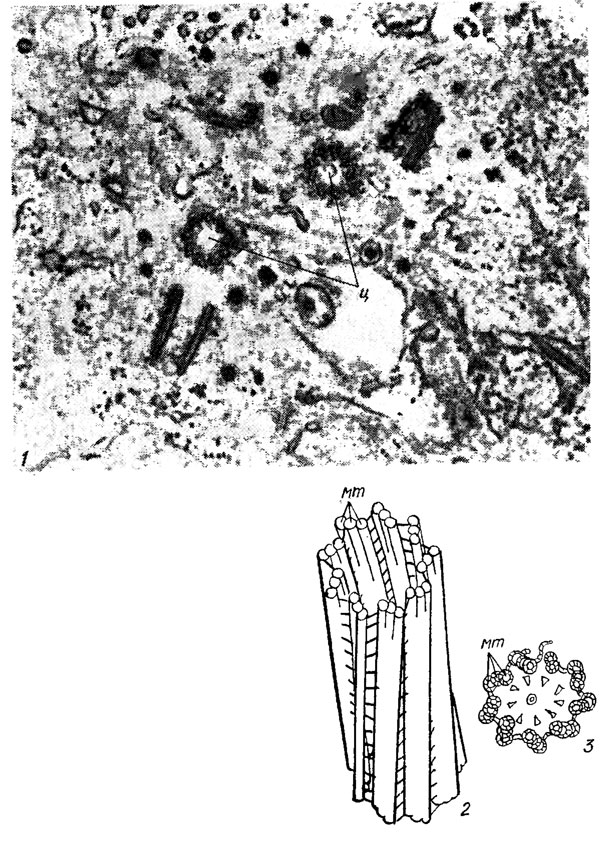
Рис. 1.26. Электронная микрофотография фрагмента клетки эукариотической водоросли с двумя парами центр нолей (1); схема строения центриоли (2 - общий вид, 3 - поперечный срез): ц - центриоль: мт - микротрубочка
Базальное тело имеет форму короткого цилиндра, стенки которого образованы 9 триплетами продольно расположенных микротрубочек; внешний диаметр базального тела равен диаметру аксонемы. Каждый из 9 периферических дуплетов аксонемы продолжается в базальное тело, где к нему присоединяется третья неполная микротрубочка. Обе центральные микротрубочки аксонемы оканчиваются выше базального тела; центр базального тела лишен микротрубочек (рис. 1.27). Микротрубочковые корни жгутиков, выходящие из базальных тел и состоящие преимущественно из 2-4 микротрубочек, у большинства видов располагаются симметрично, образуя характерные крестообразные фигуры.
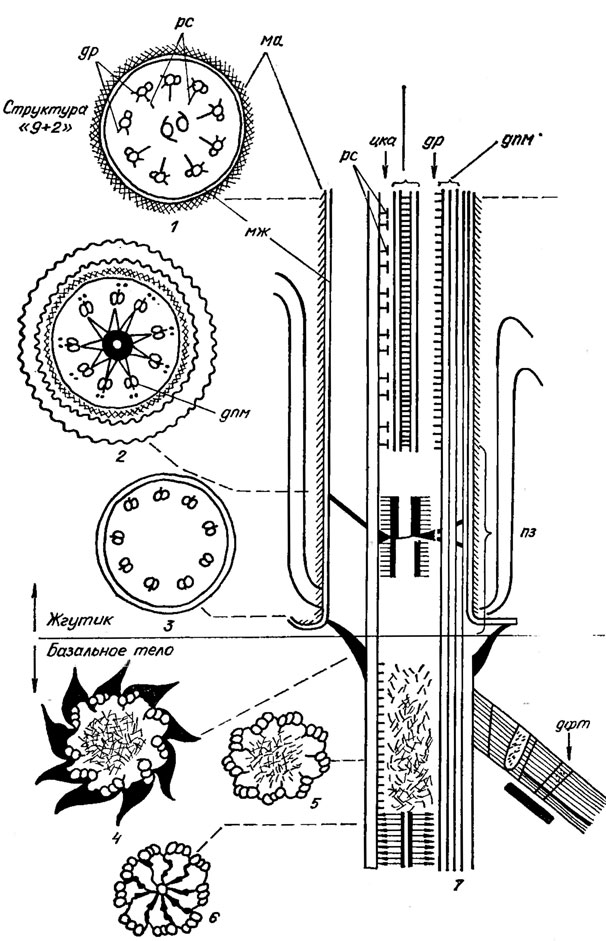
Рис. 1.27. Схема строения жгутика Chlamydomonas reinhardtii Dang, в поперечном (1-6) и продольном (7) разрезах: рс - радиальные спицы; ма - мастигонема; цка - центральная капсула аксонемы; др - динеиновые 'ручки'; дпм - дуплеты периферических микротрубочек аксонемы; мж - мембрана жгутика; пз - переходная зона; дфт - дистальный фибриллярный тяж
Среди фибриллярных структур, ассоциированных с базальными телами, выделено два основных типа: связывающие тяжи, которые связывают различные базальные тела; фибриллярные корни, возникающие при базальных телах и оканчивающиеся в различных частях клетки. Известно два типа фибриллярных корней: исчерченные тяжи, ассоциированные с микротрубочковым корнем жгутика (I система тяжей), в которых полосы чередуются с расстоянием 25-35 нм; исчерченные тяжи, состоящие из пучков тонких филаментов диаметром 5-10 нм (II система тяжей), чередующихся с расстоянием более 80 нм. Число, расположение и субструктура связывающих тяжей и фибриллярных корней значительно варьируют у разных видов водорослей.
У некоторых зеленых и харовых водорослей (Coleochaete Breb. Kiebsormidium Silva, Mattox et Bla Jewell, Chara Vaill., NitellaAg., Trentepohlia Mart.) корневая система жгутиков имеет асимметричное строение, обусловленное наличием т. н. многослойной структуры (например, сперматозоиды многоклеточных зеленых и харовых водорослей с оогамным половым процессом). Многослойная структура имеет сложное строение (рис. 1.28). Ее верхний слой, толщиной 25 нм, состоит из 22-25 тесно расположенных микротрубочек. Под ними находятся два слоя филаментов. В основании структуры лежит электронно-плотная пластинка толщиной около 5 нм. Размер многослойной структуры 600 × 360 × 90 нм. Дополнительные элементы, ассоциированные со жгутиковым аппаратом, четко оформлены в виде многослойной структуры и в сперматозоидах высших растений.
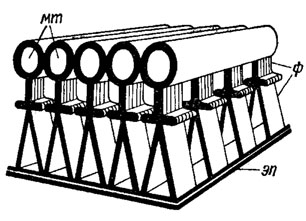
Рис. 1.28. Строение многослойной структуры Heterosigma akashiwo (Hada) Hada: мт - микротрубочки; ф - филаменты; эп - электронно-плотная пластинка основания
Клетки некоторых видов золотистых водорослей, помимо жгутиков, имеют направленный вперед вырост - гаптонему* (рис. 1.29). По длине гаптонема может быть короче, равна или длиннее жгутиков. Например, у разножгутиковой Chrysochromulina apheles длина жгутиков и гаптонемы составляет 7-10; 11-55 и 20-40 мкм соответственно. Описаны два основные типа медленного движения клеток с участием гаптонемы: 1) гаптонема у плавающей клетки направлена вперед, два жгутика со слабым биением держатся почт