



Глава III. Основные природные факторы, воздействующие на формирование альгосинузий в лесных почвах
Влияние высших растений
Значительную роль в регулировании жизнедеятельности почвенных организмов играет высшее растение, являясь мощным средообразующим и, в частности, почвообразующим фактором. Оно оказывает существенное влияние на воздушный, гидротермический, световой режимы под пологом леса и соответственно почвы. Высшие растения формируют физико-химические свойства почвы через опад и корневые системы, причем именно в зоне корней осуществляется непосредственный контакт между растениями и водорослями. Таким образом, преобразовывая среду обитания разнообразных почвенных организмов, в том числе водорослей, высшее растение оказывает на них значительное как косвенное, так и прямое воздействие.
В главе III рассматриваются различные аспекты влияния высших растений на водоросли. Сравнение альгосинузий различных лесов, растущих на одинаковой почве, дает возможность выяснить интегральное влияние растений-эдификаторов, которое проявляется через опад и его действие на свойства почвы, через световой и водный режим, через корневую систему.
Для изучения различных сторон влияния высших растений на почвенные водоросли были проведены исследования на уровне биогеоценозов, парцелл, а также ризосферные исследования.
Особенности почвенной альгофлоры различных лесных фитоценозов, развивающихся на однотипных почвах
Для выяснения роли высших растений в формировании водорослевых группировок леса важное значение имеет исходная однородность почвенного покрова.
Примером условий, где влияние высшего растения на развитие почвенных водорослей проявляется достаточно четко, следует считать разные типы древесных насаждений, произрастающие в одной географической зоне, на одном и том же типе почв.
Группировки водорослей в разных типах леса на дерново-подзолистой почве
Одно из исследований с подбором подобного рода условий было выполнено в Серебряноборском и Подушкинском лесничествах Московской области. В первом лесничестве объектами изучения были сосняк сложный дубняково-лещиновый и липняк волосистоосоковый; во втором - ельник-кисличник. Все типы леса расположены на дерново-подзолистой почве.
Подробные ботанические, лесоводственные, почвенные исследования в этих типах леса были проведены С.А.Никитиным [1961], И.Н.Васильевой [1964], С. В. Зонном и Е.А.Кузьминой [1964], И. И. Судницыным [1964], Л. О. Карпачевским и Н.К.Киселевой [1965], А.Е.Максимовой [1969,1974], Л. П. Рысиным и др. [1974]. Кроме того, здесь были выполнены работы по физиологии, микробиологии, зоологии беспозвоночных и ряду других дисциплин. Таким образом, изучение альгофлоры проводилось в рамках общих стационарных исследований.
Во всех рассматриваемых типах леса выявлены характерные особенности альгосинузий, хотя общее число видов водорослей в них различается не очень резко (табл. 14).
В сосняке сложном не только по числу видов, но и по обилию в культурах преобладают виды из отделов Chlorophyta и Xanthophyta. Из зеленых водорослей обильны представители хламидомонадовых, хлорококковых и улотриксовых; из желто-зеленых наиболее обычны одноклеточные из родов Botrydiopsis, Ellipsoid ion, многочисленные виды Characiopsis (они составляют 35,1% от общего числа желто-зеленых), а также Heterococcus chodatii. В подстилке сосняка, состоящей из хвои и значительной примеси лиственного опада, присутствуют сине-зеленые водоросли, хотя и представленные небольшим числом видов (в основном из рода Phormidium). Сосновые леса обычно характеризуются как бедные водорослями [Ваулина, 1956; Rosa, 1962; Новичкова-Иванова, 1969]. В нашем примере большое видовое разнообразие и обилие водорослей в сосняке сложном объясняются, по всей вероятности, значительным участием в древостое лиственных пород, составляющих второй ярус.
В липняке волосистоосоковом разнообразнее всего представлены одноклеточные зеленые водоросли (см. табл. 14). Желто-зеленые водоросли развиты слабее, чем в сосняке сложном. Самой обильной является Botrydiopsis arhiza. В альгофлоре липняка увеличивается роль сине-зеленых и диатомовых водорослей. Синезеленые представлены видами из порядков Oscillatoriales и Nostocales, из них Nostoc paludosum и Phormidium foveolarum входят в число преобладающих. Количество найденных здесь видов отдела ВасiIlariophyta невелико, однако Navicula mutica дает обильные разраста ния. 26% от общего числа видов водорослей, выявленных в липняке волосистоосоковом, найдено только в этом типе леса.
Таблица 14
| Тип леса | Cyanophyta | Chlorophyta | Xanthophyta | Bacillariophyta | Общее число видов | ||||
| число видов | % | число видов | % | число видов | % | число видов | % | ||
| Сосняк дубняково-лещиновый | 4 | 6,6 | 33 | 54,1 | 23 | 37,7 | 1 | 1,6 | 61 |
| Липняк волосисто-осоковый | 5 | 10,3 | 33 | 56,9 | 17 | 29,3 | 2 | 3,5 | 58 |
| Ельник-кисличник | 2 | 3,8 | 31 | 58,5 | 19 | 35,8 | 1 | 1,9 | 53 |
В ельнике-кисличнике обнаружено меньше всего видов водорослей (см. табл. 14). И здесь наиболее многочисленны и разнообразны зеленые водоросли, среди которых превалируют виды-убиквисты из Chlorococcales и представители порядка Chlamydomonadales, разнообразие которых в ельнике особенно велико, в подстилке обильны виды Chlorhormidium и Соссоmyxа. Не входят в доминирующую группу, но играют значительную роль в создании водорослевой синузии ельника-кисличника Scotiella levicostata, Chforoplana terricola, Stichococcus minor. Из желтозеленых водорослей преобладают виды Pleurochloris, Ellipso id ion и Botryochfor is cumulata. В отличие от рассмотренных выше типов леса, в ельнике сине-зеленые водоросли развиты слабо, а диатомовые встречаются единичными экземплярами.
Как видно, разница видового состава и доминирующих групп водорослей определяется прежде всего характером древесной растительности. По мере увеличения доли лиственных пород в составе древостоя возрастает число и обилие представителей синезеленых водорослей (см. табл. 14).
Группировки водорослей в различных лесных насаждениях на выщелоченном черноземе
Интересным объектом для выяснения влияния древесных растений явились искусственные лесные насаждения, созданные на выщелоченном черноземе в Моховском лесничестве Орловской области. Здесь мы имеем единый исходный почвенный фон, на который воздействуют различные виды деревьев.
Альгофлора изучалась в пяти типах лесных насаждений Моховского лесничества: еловом, сосновом, лиственничном, дубовом и березовом (см. табл. 5, участки 23 - 27). Детальные работы по изучению влияния рассматриваемых насаждений на свойства выщелоченного чернозема были проведены С. В. Зонном и Е. А.Кузьминой [1960], В. Н. Миной [1960], И. М.Розановой [1960], Д. Ф.Соколовым [1963]. Микробиологической характеристике почвы исследуемых насаждений посвящены работы Е. В. Руноваи И. Е. Мишустиной [1960], С. В.Егоровой [1962,1968] и других, распределению беспозвоночных животных - Т. С. Перель [1958].
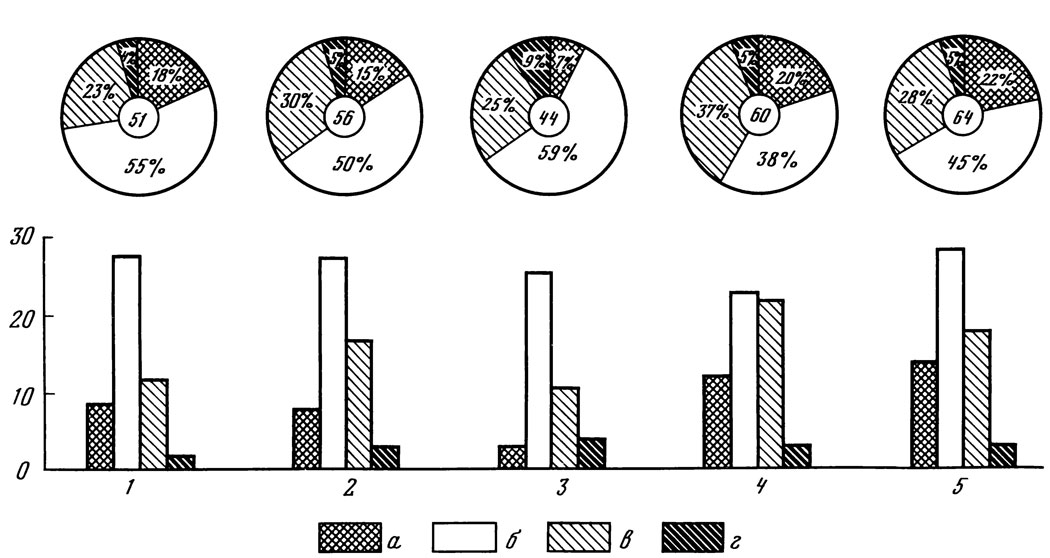
Рис. 10. Соотношение числа видов водорослей разных отделов в лесных насаждениях на выщелоченном черноземе. 1 - еловое; 2 - сосновое; 3 - лиственничное; 4 - дубовое; 5 - березовое насаждения. Во внутреннем круге - общее число видов водорослей, в наружном круге - процентное соотношение разных отделов: а - сине-зеленые; б - зеленые; в - желто-зеленые; г - диатомовые водоросли
Под разными лесными насаждениями в выщелоченном черноземе обнаружены различия в характере альгофлоры, выражающиеся в изменениях числа видов водорослей, соотношении различных систематических групп и степени их развития, а также в составе превалирующих видов водорослей.
Самое большое видовое разнообразие водорослей обнаружено в березовом насаждении, наименьшее - в лиственничном (рис. 10). Интересно, что березовая подстилка и почва под березой оказались наиболее обсемененными бактериями; здесь же обнаружено самое большое количество дождевых червей; в ризосфере березы отмечено максимальное количество микроорганизмов [Перель, 1958; Рунов, Мишустина, 1960]. Указанная повышенная активность многих групп организмов в березовом насаждении может быть связана с наилучшей оструктуренностью почвы, самым высоким pH, наименее выраженной фитонцидностью корней березы и рядом других свойств [Розанова, 1960; Егорова, 1962]. Во всех насаждениях самое большое число видов приходится на зеленые водоросли, второе место по числу видов занимают желто-зеленые водоросли. Синезеленые менее разнообразны, особенно в лиственничном лесу. Диатомовые водоросли во всех изученных лесах представлены единичными видами. Таким образом, распределение водорослей по отделам и в лесах на выщелоченном черноземе остается в основном сходным с наблюдаемым в ранее рассмотренных подзолистых, дерново-подзолистых и темно-серых лесных почвах.
Соотношение систематических групп водорослей в каждом типе леса достаточно специфично, что видно на приводимых спектрах (см. рис. 10); при этом наибольшее разнообразие видов водорослей не обязательно сопровождается обилием особей этого отдела.
В хвойных лесах - еловом, сосновом и лиственничном - на долю видов Chlorophyta приходится больше половины всех обнаруженных видов; зеленые водоросли здесь превалируют и по степени развития. В ельнике разнообразие видов из отделов Xantophyta и Cyanophyta довольно близкое, а в сосняке и лиственничнике число видов первого отдела в 2 - 3,5 раза выше, чем второго.
В еловом лесу в подстилке зеленые водоросли, представленные в основном нитчатыми формами, сопровождаются желто-зелеными и сине-зелеными нитчатками, а в почве из зеленых, кроме видов Ulotrichales, господствуют представители рода Chlamydomonas при субдоминировании желто-зеленых из Heterococcales.
В сосновом лесу выявлено значительное количество видов водорослей. Здесь отмечено более обильное развитие синезеленых и диатомовых, что, возможно, связано с наличием подлеска, состоящего в основном из бузины.
Примесь лиственных пород в хвойных лесах существенно изменяет в них биологический круговорот [Ремезов и др., 1959]. Листья бузины богаты зольными элементами и азотом, поэтому они могут ускорять разложение подстилки в сосняке [Розанова, 1960; Соколов, 1963], что способствует развитию в сосновом насаждении многих видов водорослей, в том числе сине-зеленых и диатомовых.
В лиственничном лесу наряду с общей видовой обедненностью отмечена малочисленность видов синезеленых и диатомовых, которые имеют здесь и самое слабое развитие. В лиственничнике обнаружены сравнительно невысокие запасы питательных элементов, при этом содержание кальция ниже, чем фосфора, кремнезема и калия; довольно низким оказался рН лиственничной подстилки [Розанова, 1960]. В то же время корни лиственницы, обладающие самой высокой фитонцидностью, оказали наибольшее угнетающее действие на все группы микроорганизмов, на рост корешков и величину проростков растений [Егорова, 1962]. Все это вместе взятое, по-видимому, в значительной мере объясняет как обедненность видового состава, так и небольшое разнообразие и развитие указанных выше отделов водорослей в лиственничном насаждении.
В лиственных лесах на долю представителей отдела Chlorophyta приходится не более 38-45% от всех видов водорослей. В дубовом насаждении возрастает процентное содержание желто-зеленых водорослей, почти сравниваясь с содержанием зеленых; в березняке почти одинаково соотношение желто-зеленых и сине-зеленых водорослей (см. рис. 10).
В дубраве превалируют зеленые и сине-зеленые водоросли; последние значительно представлены в подстилке (12 видов) и в верхнем 5-сантиметровом слое почвы (10 видов). Не уступающие зелёным водорослям по разнообразию виды желто-зеленых имеют здесь меньшее обилие в культурах, чем первые. В доминирующий комплекс подтилки входят диатомовые водоросли, хотя видовое разнообразие их незначительно.
В березняке как по сравнению с другими типами насаждений, так и по сравнению с другими отделами водорослей, наиболее обильны сине-зеленые водоросли, представленные видами из Nostocales, и несколько меньше из Oscillatoriales. Богата ими не только подстилка (14 видов), но и весь 10-сантиметровый слой почвы. Из зеленых водорослей больше, чем в дубняке, встречено хламидомонад. Таким образом, видно, что характер доминирующего комплекса водорослей в разных насаждениях варьирует.
Своеобразие каждого из изучаемых насаждений заключается и в видовом составе доминирующих водорослей. Так, преобладающие в подстилках зеленые нитчатки в еловом, сосновом и лиственничном лесах представлены родом Chlorhormidium, к которому в еловом лесу присоединяется еще Stichococcus minor; в дубняке и березняке - родом Ulothrix, дополненным в березовом насаждении обильной Microspora tumidula. Из входящих в доминирующий комплекс колониальных зеленых водорослей под всеми породами присутствует Borodinella polytetras, особенно обильная под березой и сосной, несколько меньше - под лиственницей. Кроме нее, в почве сосняка значительно развиты Palmella, в почве дубняка - Chlorosarcinopsis, а под березняком - Disporopsis. Наиболее же обильны колониальные формы зеленых водорослей в почве березового и соснового лесов. Преобладающие колониальные формы из отдела Xanthophyta представлены: в еловом лесу родом Botryochloris, в березовом - родом Sphaerosorus, в дубовом и сосновом - родом Gloeobotrys. Почвенная альгофлора изученных лесных насаждений содержит определенное количество специфических видов, нередко совпадающих с видами, выявленными для сходных растительных ассоциаций, но произрастающих на другом типе почв.
Как и на дерново-подзолистой почве, здесь обнаружены особенно заметные различия между группировками водорослей хвойных и лиственных лесов. Лиственные леса оказались более насыщенными видами водорослей по сравнению с чистыми хвойными насаждениями. Лиственные леса богаче хвойных синезелеными водорослями. В лиственных лесах обильнее и диатомовые водоросли, однако во всех типах насаждений их видовое разнообразие остается очень небольшим.
Одной из характерных черт альгосинузий хвойных лесов, особенно елового, является разнообразие и активное развитие видов Chlamydomonas, входящих в состав доминирующей группы водорослей. В дубовом и березовом насаждениях хламидомонады не только представлены меньшим числом видов, но и не обнаруживают столь значительного развития. Сходные данные находим у Л. Н. Новичковой-Ивановой [1968], которая указывает на обильное развитие хламидомонад как на основное отличие синузии чистого соснового леса от дубово-лиственнично-соснового. Такие же особенности альгофлоры хвойных лесов описаны нами ранее для более северных районов.
Специфика группировок водорослей в разных лесных насаждениях связана с условиями, складывающимися под пологом различных древесных пород. Благодаря же тому, что изученные насаждения были заложены на одном и том же типе почвы, в идентичных условиях, можно считать, что все эти условия складываются прежде всего в зависимости от вида дерева-эдификатора.
Следует подчеркнуть многообразие влияния высших растений на все экологические особенности лесного биогеоценоза.
Характер растительности влияет на ряд свойств почвы, в частности, на ее активную реакцию, которая в значительной мере определяет степень развития водорослей и тип альгофлоры [Голлербах, 1936; Schelhorn, 1936, Stokes, 1940, John, 1942, Lund, 1947a; 1962; Голлербах, Штина, 1969; По- цене, 1970; Rosa, Lhotsky, 1971]. Низкое значение рН в кислых лесных почвах ограничивает развитие водорослей [Chodat, Chastain, 1957]. Особенно сильно низкая кислотность почв сказывается на развитии наиболее чувствительных к ней видов отделов Cyanophyta и Bacillariophyta, обусловливая или их малочисленность и бедность состава [Flint, 1958, MacEntee, Bold, 1974], или почти полное отсутствие [Schelhorn, 1936, Hofstetter, 1968, Jurgensen, Davey, 1968, MacEntee, 1970]. Брендемюль [Brendemuhl, 1949], сравнивая лиственные и хвойные леса, отметила, что в последних диатомовые водоросли отсутствовали в 80% случаев, в то время как в первых - лишь в 43% случаев, и считала одной из причин бедности флоры ди- атомей в хвойных лесах кислую реакцию почвы.
В разных типах леса складывается различный режим влажности. С влажными местообитаниями и типами леса связано наибольшее развитие водорослей [Rosa, 1962; Носкова, 1968а] и, в частности, отдельных влаголюбивых групп, представители которых рассматриваются как индикаторы почвенной влажности [Бусыгина, 1974, 1976], например, диатомей [France, 1913, Brendemuhl, 1949], сине-зеленых из порядка Chroococcales [Носкова, 1968б], некоторых видов зеленых водорослей [Мейер, 1937; Голлербах, Штина, 1969; Новичкова-Иванова, 1969].
Высшими растениями определяется световой режим в лесу, влияющий на водорослевые группировки. Благоприятным периодом для развития водорослей является время, когда листья на деревьях отсутствуют [Petersen, 1935, Lund, 1945]. Недостаток света, связанный с густым растительным покровом или наличием мощной лесной подстилки, обусловливает снижение развития водорослей в лесных почвах [Brendemuhl, 1949, Hofstetter, 1968, Jurgensen, Davey, 1968; Новичкова-Иванова, 1969]. Косвенное влияние высших растений на водоросли может осуществляться также через изменения температурного и пищевого режима среды обитания водорослей.
Так как образованием, трансформирующим влияние высших растений на живое население почвы, является подстилка, то специфические особенности альгофлоры в разных типах леса могут быть обусловлены различиями в количестве и свойствах опада и подстилки, зависящими от породного состава деревьев. Если учесть к тому же, что основное распространение водорослей в лесах ограничено подстилкой и самыми верхними слоями почвы (глава II), то можно предполагать, что различия в альгофлоре разных типов леса прежде всего будут проявляться в особенностях альгофлоры подстилок. Поэтому целесообразно более подробно рассмотреть роль лесной подстилки в формировании альгосинузий лесов.
Влияние лесной подстилки
Особая роль лесной подстилки в жизни лесных биогеоценозов подчеркивается как геоботаниками [Сукачев, 1961; Работнов, 1978; и др.], так и почвоведами [Зонн, 1964; и др.]. Через подстилку и населяющие ее организмы проходит один из главных путей воздействия растений на почвообразовательный процесс. Рассматривая подстилку как специфическое лесное органогенное образование, обращают внимание на следующие его особенности: подстилка является результатом жизнедеятельности организмов, она регулирует воздействие последних на почву и вынос подвижных соединений; наконец - подстилка является горизонтом наиболее активной биогео-ценотической деятельности. Все микробиологические процессы протекают в подстилке более интенсивно, чем в почвах. Микробное население подстилок своеобразно и характеризуется иными качественными и количественными показателями, чем микрофлора почвы: на 1 г сухого вещества подстилок приходится в десятки и сотни раз больше микроорганизмов, чем на соответствующую навеску почвы [Егорова и др., 1964]. Правда, надо иметь в виду, что объемные массы подстилки и почвы тоже различаются на порядок. Растительному опаду и лесной подстилке принадлежит важная роль и в формировании водорослевых группировок [Штина, Ройзин, 1966; Носкова, 1968а; Алексахина, 1971 - 1982; Чаплыгина, 1977; и др.]. В подстилке создаются некоторые условия, благоприятные для развития водорослей: освещенность, накопление влаги, происходящее даже за счет конденсационной воды. Выше (глава II) было показано, что численность водорослей, как и гетеротрофных микроорганизмов, в подстилке выше, чем в почве (см. рис. 2, 5 - 8; табл. 9, 11). Вместе с тем подстилка обладает рядом свойств, ограничивающих жизнедеятельность некоторые видов водорослей и обусловливающих отбор специфических видов, характерных для подстилок. Такими неблагоприятными для водорослей особенностями подстилки являются: обилие органического вещества, которое интенсивно разлагается массой гетеротрофных организмов - антагонистов водорослей и наличие ряда токсических соединений, содержащихся в опаде или образуемых микроорганизмами. При изучении гетеротрофной микрофлоры установлено [Рунов, Мишустина, 1960; Рунов, Егорова, 1962; Егорова и др., 1964; и др.], что в зависимости от биохимического состава подстилок и почвенно-климатических условий подстилки заселяются специфическими видами и разложение идет по определенному типу. Наибольшие различия в микрофлоре подстилок наблюдались между хвойными и лиственными породами [Егорова и др., 1964; Егорова, Лаврова, 1982; и др.].
Подобные различия упоминались выше и в отношении водорослей (см. рис. 3, глава II). Во всех изученных лесах обнаружены различия в составе и числе видов водорослей между подстилкой и почвенными горизонтами. Отмечена видовая обедненность подстилок по сравнению с почвой, что особенно заметно выражено в хвойных лесах. Этот факт, с одной стороны, объясняется меньшим разнообразием хламидомонад и желто-зеленых водорослей в подстилке, а, с другой стороны, обусловливается небольшим разнообразием видов Cyanophyta и Bacillariophyta, т. е. тех отделов водорослей, основное распространение которых, как это было показано выше, приурочено к подстилке.
При сравнении количества видов и численности водорослей в подстилках восьми различных типов леса (табл. 15) подтвердилась полученная закономерность: с увеличением доли листового опада возрастает роль синезеленых и диатомовых водорослей.
Следует заметить что в таблице приведены данные только по весеннему сроку (это необходимо было для сопоставления результатов). Осенью, когда водоросли описываемых отделов развиваются в лесных почвах наиболее интенсивно, разница между хвойными и лиственными подстилками проступает еще резче.
Таблица 15
| Тип леса | Сине-зеленые | Диатомовые | ||
| % от числа видов | % от количества клеток | % от числа видов | % от количества клеток | |
| Ельник-черничник | 7,1 | <4,0 | 0 | 0 |
| Ельник-кисличник | 8,0 | - | 4,0 | 0 |
| Дубо-ельник волосистоосоковый | 17,7 | 3,6 | 5,9 | 3,1 |
| Липняк волосистоосоковый | 20,7 | - | 6,9 | - |
| Дубо-липняк волосистоосоковый | 22,2 | 9,2 | 7,4 | 3,6 |
| Дубрава снытево-осоковая | 31,6 | 46,3 | 6,3 | 2,8 |
| Дубрава пойменная | 65,3 | 75,0 | 10,2 | 6,8 |
| Дубрава солонцовая | 27,0 | 38,1 | 13,5 | 22,4 |
Примечание. Прочерк означает отсутствие количественного учета.
Значительное развитие видов Cyanophyta в лиственных лесах отмечено и для других местообитаний [Матвиенко, 1950; Штина, 1959а; Gruia, 1965; Носкова, 1968а; Новичкова-Иванова, 1969; MacEntee, 1970; и др.].
В качестве условий, лимитирующих распространение сине-зеленых водорослей (в частности, азотфиксирующих) в хвойных лесах могут выступать факторы, связанные с косвенным влиянием высшего растения [Jurgensen, Davey, 1968], например, кислотность, низкая интенсивность света, менее благоприятные условия влажности и температуры. Действительно, под изученными лиственными лесами обнаружились более глубокие промачиваемость почвы и проникновение корней, большие величины доступной для растений влаги и полевой влагоемкости, более высокая температура почвы, меньшая кислотность подстилки и почвы и более высокое содержание многих зольных элементов, чем под хвойными лесами [Васильева, 1964; Зонн, Кузьмина, 1964; Судницын, 1964].
Как было установлено, лиственные леса вовлекают в биологический круговорот значительно больше зольных элементов питания, в том числе кальция, калия, азота и фосфора, чем хвойные [Ремезов и др., 1959]. В лиственных лесах шире, чем в хвойных, соотношение N : С, т. е. лиственные подстилки относительно обогащены азотистыми веществами [Розанова, 1960].
В изученных лесах подстилка липняка характеризуется минимальной кислотностью (pH горизонта А0 в липняке 6,2, а в ельнике - 5,5), наибольшим содержанием азота и кремния и достаточным количеством кальция [Максимова, 1974], значительной интенсивностью процессов минерализации, высокой активностью разложения клетчатки и интенсивной нитрификационной способностью. [Терехов, Еникеева, 1964; Большакова, 1974].
Благодаря значительной примеси листового опада (за счет присутствия лещины) заметно улучшаются свойства хвойной подстилки в сосняке. Листовой опад, богатый зольными элементами, нейтрализует органические кислоты, увеличивая pH подстилки [Судницын, 1964]. В сосняке, сложном по сравнению с чистыми хвойными насаждениями, интенсивнее проходит минерализация подстилки и опада, в почве содержится больше растворимых органических веществ, отмечается более высокая концентрация подвижных соединений кальция, фосфора и калия [Максимова, 1969, 1974]. С увеличением доли листового опада улучшаются и некоторые физические свойства хвойной подстилки, в частности, возрастает влагоемкость и уменьшается объемный вес подстилки [Теребуха, 1969].
Таким образом, в смешанных и особенно лиственных лесах складываются условия, более благоприятные для развития сине-зеленых и диатомовых водорослей, отличающихся высокой потребностью в кальции, азоте и кремнии и приуроченностью к менее кислым условиям среды и к субстратам, где интенсивнее протекают процессы минерализации [Schelhorn, 1936, Lund, 1945, 1947 а, в, 1962; Brendemuhl, 1949, Hofstetter, 1968, Holm-Hansen, 1968; Кордэ, 1960; Голлербах, Штина, 1969]. Следует присоединиться к мнению К. Розы [Rosa, 1S56, 1962], который большое значение в развитии сине-зеленых водорослей придает листовому опаду.
Вместе с тем в подстилках лиственных лесов оказалась выше ферментативная активность, вследствие чего они содержат легкодоступные, а подстилки хвойных - более закрепленные органические вещества [Рунов, Мишустина, 1960]. В подстилках и почве лиственных насаждений, а также в ризосфере лиственных пород энергичнее протекают процессы нитрификации. В почвах под изученными лиственными лесами обнаружены больший обменный вес, pH и влажность, запас гумуса и количество углеродсодержащих веществ, более интенсивное выделение CO2 [Рунов, Соколов, 1958; Мина, 1960; Соколов, 1963]. Однако подстилки в большинстве случаев содержат меньшее число водорослей, чем почва (см. рис. 3), т. е. некоторые виды выпадают из альгофлоры подстилок.
Определенная селекционирующая роль опада и подстилки связана, очевидно, с наличием в ней летучих и воднорастворимых физиологически активных веществ и фитонцидными свойствами подстилки [Рунов, Еникеева, 1955]. Так, по отношению к гетеротрофным микроорганизмам было обнаружено, что подстилки хвойных пород обладают более сильным угнетающим действием, чем подстилки лиственных [Егорова, 1968; Гришина, 1974]. Сильное токсичное влияние на микроорганизмы оказали экстракты из опада дуба и клена [Рунов, Егорова, 1962]. Авторы объясняют фитонцидность подстилок наличием фенольных группировок в дубильных веществах и накоплением продуктов жизнедеятельности микроорганизмов.
Т. А. Овчинникова [1980] показала токсичное влияние вытяжек из листового опада дуба на развитие хлореллы, выд