



Порядок десмидиевые (Desmidiales) (Г. М. Мордвинцева)
Десмидиевые водоросли характеризуются удивительным разнообразием очертаний, красотой форм и замечательной симметрией клеток. Водоросли, входящие в состав этого порядка, издавна привлекали к себе внимание не только профессиональных исследователей, но и любителей, благодаря чему сейчас эта группа насчитывает уже около 4000 видов. Уникальные черты организации, своеобразие вегетативного деления и полового воспроизведения, особенности строения оболочки и высокая степень физиологической избирательности среды продолжают и теперь вызывать у исследователей глубокий интерес к десмидиевым.
Общее название "десмидиевые" (греч. "десмос" - связка) было дано этим водорослям в середине прошлого века в связи с тем, что наиболее часто встречаемые и широко распространенные их представители, первыми ставшие известными исследователям, имели клетки, соединенные в длинные нити или цепочки, хотя преобладающее большинство ныне известных форм существуют как одноклеточные организмы. Более того, под этим же названием в течение длительного времени объединяли три различных порядка в классе конъюгат, так как к десмидиевым до недавнего времени относили, кроме порядка собственно десмидиевых, также представителей порядков мезотениевых и гонатозиговых.
Форма клеток. Десмидиевые водоросли в основном одноклеточные организмы. Реже среди них встречаются и колониальные организмы, образующие длинные нити и цепочки или рыхлые колонии. Типичная клетка десмидиевых водорослей (рис. 247) состоит из двух симметричных половинок, так называемых полуклеток, каждая из которых является зеркальным отражением другой. Благодаря своеобразному способу деления клеток у десмидиевых, которое будет описано ниже, одна полуклетка всегда старше другой. Обе полуклетки соединены между собой более узкой частью - перешейком. Угол, возникающий между двумя полуклетками в результате сжатия или сужения клетки, называют синусом.
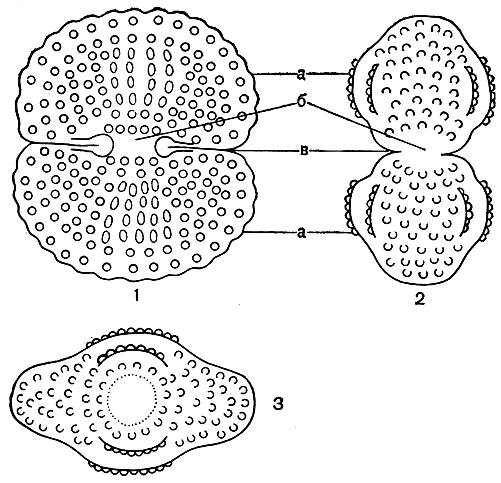
Рис. 247. Внешний вид типичной клетки десмидиевой водоросли в трех разных положениях (схема): 1 - вид спереди; 2 - вид сбоку; 3 - вид сверху, а - полуклетки, б - перешеек, в - синус
Он может быть узким и длинным, закрытым или открытым, с краями, расходящимися наружу от острой или закругленной верхушки.
Внешний вид клеток десмидиевых в большинстве случаев зависит от того, с какой стороны их рассматривают под микроскопом. Различают вид спереди (с широкой, лицевой стороны), вид сбоку и вид сверху (или снизу, рис. 247). Таким образом, клетки имеют три плоскости симметрии. Разнообразие очертаний клетки с различных сторон имеет большое значение в систематике десмидиевых. Несколько видов могут иметь очень сходные очертания при рассматривании их спереди, но при этом резко отличаться друг от друга при рассматривании сбоку или сверху. Однако клетки некоторых видов из родов доцидиум (Docidium) и актинотениум (Actinotaenium) сверху округлые и, следовательно, имеют одинаковые очертания при любых поворотах вокруг длинной оси (рис. 248, 1, 2). Своеобразно строение клетки у видов клостериума (Closterium, рис. 248, 3). Они обычно сужены к концам, не перешнурованы и имеют более или менее серповидную форму, в результате образуются неодинаковые спинной и брюшной края. Спинной край бывает более или менее выпуклым, а брюшной - вогнутым или почти прямым. Однако ясная симметрия полуклеток сохраняется.
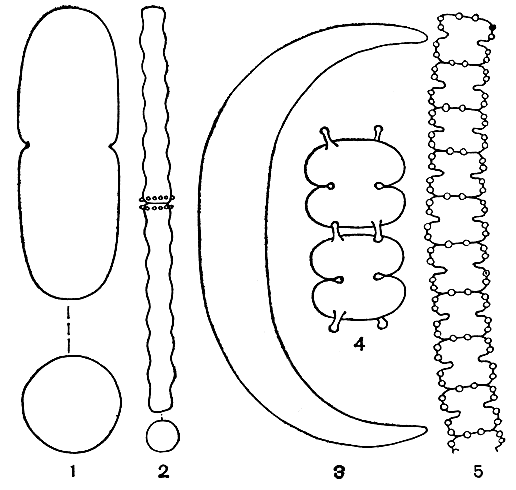
Рис. 248. Разнообразие формы клеток у десмидиевых водорослей: 1 - Actinotaenium cucurbitinum, внизу - вид сверху; 2 - Docidium undulatum, внизу - вид сверху; 3 - Closterium manschuricum; 4 - Sphaerozosma filiformis; 5 - Teilingia granulata
Перешнурованные виды десмидиевых, к которым относится большинство этих водорослей, характеризуются огромным разнообразием формы клеток (рис. 249, 250). У одних клетки сильно вытянутые, цилиндрические, в поперечном сечении округленные или звездчатые; у других - сильно сжатые и плоские. У некоторых представителей развиваются особые отростки и шипы на углах полуклеток. У рыхло-колониальных и нитчатых десмидиевых клетки соединены особыми образованиями (бугорками, гранулами, выступами) или слизью (рис. 248, 4, 5).
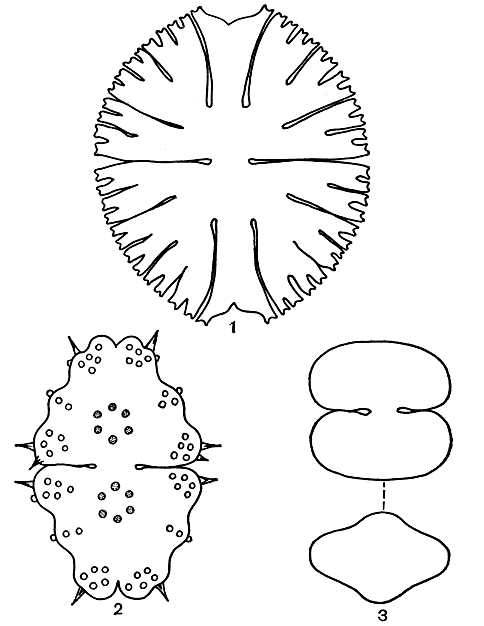
Рис. 249. Разнообразие формы клеток у десмидиевых водорослей: 1 - Micrasterias rotata; 2 - Euastrum divaricatum; 3 - Cosmarium protuberans, внизу - вид сверху
Одним из наиболее характерных признаков десмидиевых является чрезвычайное многообразие очертаний клеток. Края их часто разделены на дольки, или сегменты, или сильно изрезаны. Самые сложные очертания - у клеток из родов микрастериас (Micrasterias), эуаструм (Euastrum) и стаураструм (Staurastrum) (табл. 37, 4, 5; рис. 249, 2, 2; 250). Форма и очертания клеток имеют большое значение при определении отдельных видов.
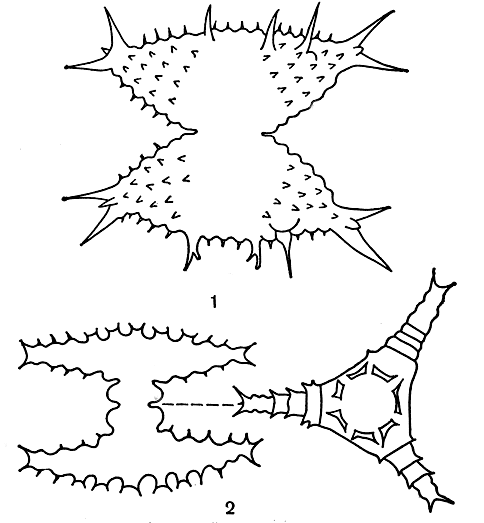
Рис. 250. Разнообразие форм клеток у десмидиевых водорослей: 1 - Staurastrum pelagicum; 2 - Staurastrum cyclacanthum, справа - вид сверху
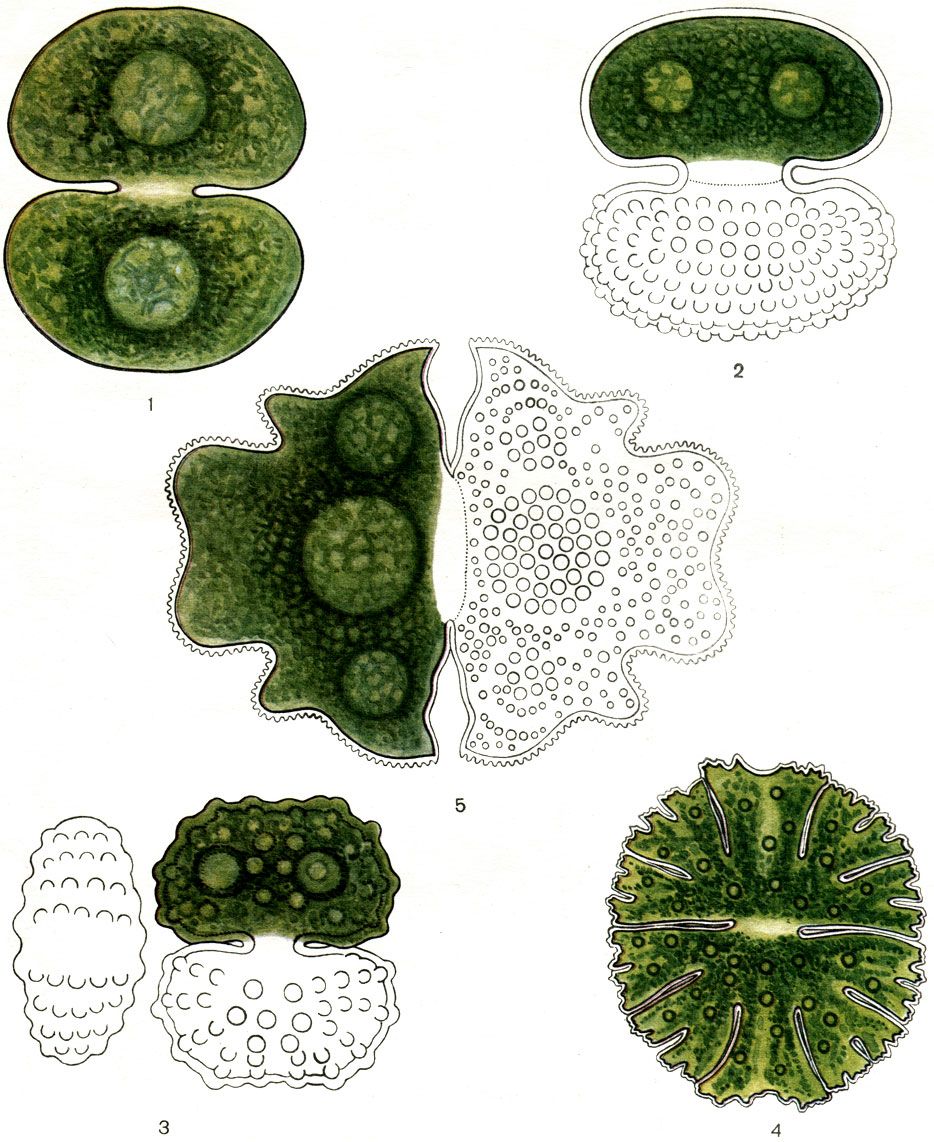
Таблица 37. Десмидиевые водоросли: 1 - Cosmarium subtumidum ( X 1350); 2 - С. repiforme ( X 900); 3 - С. quinarium ( X 900); 4 - Micrasterias conferta ( X 300); 5 - Euastrum verrucosum
Оболочка клеток. Клетки десмидиевых обладают слоистой оболочкой. Новейшие исследования показали, что она состоит из трех слоев. Самый внешний слой, который до недавних пор не был известен исследователям, кажется под электронным микроскопом то петлеобразным, то гладким или имеет вид пчелиных сот. Химическая природа этого слоя еще неизвестна. Предварительные исследования показывают, что он содержит пектинообразное вещество. У молодых клеток внешний слой оболочки тонкий, у старых достигает значительной толщины. За внешним слоем следует первичная оболочка, затем вторичная оболочка - самый внутренний слой. Первичная и вторичная оболочки при рассматривании клетки в световом микроскопе не отличаются друг от друга и представляются как один целлюлозосодержащий слой. Однако с помощью электронного микроскопа можно хорошо различить их строение. Первичная оболочка состоит из тончайших волоконец - микрофибрилл, имеющих вид пучков соломы, которые перекрещиваются друг с другом. Вторичная оболочка состоит из более широких волоконец - фибриллярных лент, расположенных параллельно микрофибриллам первичной оболочки. Такая оболочка служит хорошей защитой и опорой для содержимого клетки.
Сложность строения оболочки у десмидиевых водорослей усугубляется также наличием в ней особых круглых или овальных отверстий - пор. Они имеют разное значение. Прежде всего поры служат для выделения экскреторной слизи, которая постоянно окружает клетки десмидиевых. Через поры удаляются из клетки ненужные продукты жизнедеятельности. Поры служат и для поступления питательных веществ из окружающей среды в клетку, так как внешний слой оболочки сам по себе непроницаем.
Расположение пор в оболочке у разных видов десмидиевых бывает очень разнообразным. У некоторых представителей поры очень мелкие и многочисленные. Они сосредоточиваются в определенных местах или равномерно распределяются по всей оболочке. У других видов поры бывают крупными и немногочисленными. Они также располагаются в определенных местах, чаще на концах клеток. У третьих видов имеются и мелкие и крупные поры и расположение их также бывает различным.
Поры у десмидиевых представляют собой не просто отверстия в оболочке, а имеют часто сложное строение. Исследования под электронным микроскопом показали, что у этих водорослей имеются два типа строения порового аппарата - тип клостериума и тип космариума.
У представителей рода клостериум поровый аппарат наиболее примитивен. Он состоит из порового канала обратноворонкообразной формы (рис. 251, 1), узкая часть которого, являющаяся собственно порой, расположена во внешнем слое оболочки, а более широкая часть проходит через первичную и вторичную оболочки. Фибриллы этих оболочек пронизывают широкую часть канала, закрывая его своеобразным ситом, через которое может проходить клеточное вещество и выбрасываться наружу через узкую часть. Поровый аппарат типа космариума характеризуется наличием свободного сквозного канала (рис. 251, 2), обычно снабженного различными приспособлениями.
Самое сложное строение порового аппарата встречается, например, в роде микрастериас (рис. 251, 3). Здесь настоящий поровый канал снабжен особыми поровыми нитями. Снизу он начинается на внутренней границе вторичной оболочки поровой луковичкой, проходит через первичную оболочку и внешний слой и заканчивается над внешним слоем конечными запонками. Поровые нити - трубоподобные образования, которые расширяются наружу в бокаловидные конечные запонки. Поровые луковички имеют вид коротеньких гвоздиков с широкой шляпкой, которые погружены своим острием в поровый канал: они сидят в поровом канале, как затвор умывальника в отверстии для стока. Это приспособление в поровом аппарате имеет большое значение. С его помощью поры по мере надобности могут то открываться, то закрываться. В данном случае поровый механизм служит не только для выделения отбросов и поступления питательных веществ, но и предохраняет клетку от нежелательной потери клеточного вещества, а также проникновения в клетку вредных веществ снаружи.
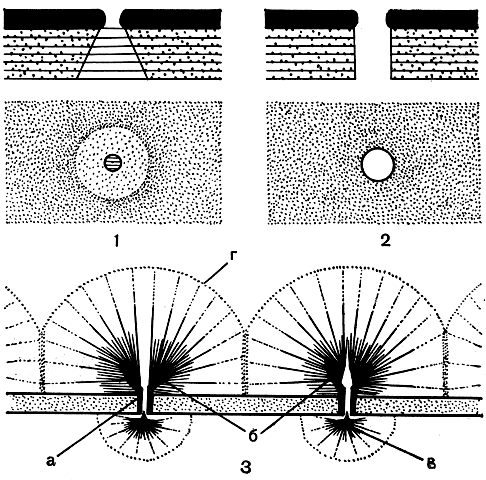
Рис. 251. Строение порового аппарата клеток у десмидиевых водорослей: 1, 2 - общие схемы основных типов порового аппарата в разрезе (в верху ) ис поверхности (внизу ) (1 - тип клостериума, 2 - тип космариума); 3 - схематическое изображение электронно-микроскопической картины порового аппарата у Micrasterias rotata (поперечный разрез): а - поровые нити, б - конечные запонки, в - поровая луковица, г - слизистые призмы
Кроме пор, структура внешней оболочки десмидиевых может быть усложнена наличием особых скульптурных украшений: гранул, ямок, бородавок и шипов, большинство которых расположены в определенном порядке. Они отдельно или в сочетании с особыми выпуклостями, буграми и отростками оболочки создают удивительные узоры, которые придают особую красоту и разнообразие десмидиевым. Эти скульптурные украшения являются важными систематическими признаками при различении таксономических единиц порядка.
Внешний слой оболочки у многих десмидиевых бывает пропитан соединениями железа, отложения которых располагаются у разных видов по-разному, в зависимости от их принадлежности к тому или другому роду. Железо часто откладывается в местах скульптурных украшений и особенно часто в районе перешейка (рис. 252, 1-3). У отдельных видов железа откладывается так много, что оболочка их клеток приобретает желтый, ржавый или темно-коричневый цвет. Способность клеток десмидиевых к накоплению железа считается хорошим систематическим признаком, но все же у некоторых родов оно до сих пор не обнаружено.
Внешний слой оболочки благодаря присутствию пектина и наличию пор часто образует толстый слизистый покров, полностью окутувающий особь или - у нитчатых форм - всю нить (рис. 252, 4, 5). С помощью этого слизистого покрова многие десмидиевые приклеиваются к высшим водным растениям или другим водорослям; другие же увеличивают свою плавучесть для парения в воде.
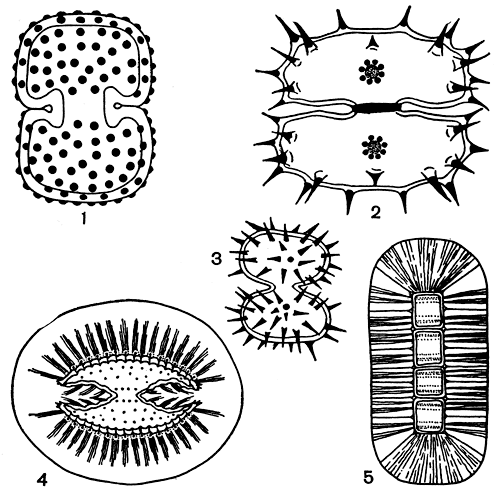
Рис. 252. Отложение железа на клетках (1-3) и слизистые покровы (4,5) у десмидиевых водорослей: 1 - Cosmarium quadrum; 2 - Xanthidium aculeatum; 3 - Staurastrum gladiosum; 4 - Staurastrum sonthalianum; 5 - Hyalotheca mucosa
У некоторых представителей клетки объединены в нити посредством слизистых тяжей, проходящих между прилегающими верхушками смежных клеток. При этом связь клеток оказывается настолько крепкой, что нити разрываются намного легче в районе перешейка клетки, чем в точках верхушечного прикрепления. Такое склеивание посредством слизи, выделяющейся между прилегающими верхушками клеток, иногда дополняется развитием верхушечных отростков оболочки клеток, как у видов родов сферозосма (Sphaerozosma) и тейлингия (Teilingia) (рис. 248, 4, 5).
У колониального рода космокладиум (Cosmocladium) клетки удерживаются вместе с помощью слизистых стебельков, образуя небольшую, разветвленную, свободноплавающую колонию (рис. 260, 1, 2). У рода оокардиум (Оосаrdium) колония имеет вид полушария, достигающего в диаметре 1-2 мм и прикрепляющегося к известковым скалам. Она состоит из более или менее параллельных, расходящихся лучами слизистых нитей значительной толщины. Каждая нить расширяется по направлению к поверхности колонии и иногда разветвляется. На свободном конце каждой слизистой нити расположена одна клетка. Она размещена так, что ее продольная ось лежит перпендикулярно к оси слизистой нити (рис. 260, 3).
У некоторых видов образуется очень плотная слизь, которая окружает клетку в виде футляра и служит защитой при неблагоприятных условиях: она предохраняет клетку от недостатка влаги и защищает ее от высыхания.
Движение клеток. Десмидиевые водоросли обладают способностью двигаться с помощью особой слизи, которая выделяется через специальные крупные поры, размещенные на концах клеток. Движение свойственно всем представителям десмидиевых, но особенно хорошо оно изучено у видов рода клостериум. Движение у них осуществляется таким образом. Один конец клетки клостериума временно прикрепляется к субстрату, а другой конец выполняет ритмические колебательные движения под углом в 180°. Через некоторое время свободный конец клетки прикрепляется к субстрату, а колебательные движения начинает первый конец. Так, прикрепляясь то одним, то другим концом, клетка клостериума передвигается по субстрату. При температуре воды +33 °С смена позиции клетки происходит через 6-8 мин. У других родов также отмечено неправильное, порой спазматическое движение, но иногда оно имеет плавный характер. Некоторые виды образуют слизистые "ножки", приподнимающие клетку над субстратом.
Все десмидиевые положительно фототаксичны. В ясные солнечные дни они всегда собираются у поверхности воды. Если склянку с живыми десмидиевыми водорослями поставить на окно, то через некоторое время клетки сконцентрируются на освещенной стороне.
Протопласт. У десмидиевых протопласт заполняет всю полость клетки. В цитоплазме находятся хлоропласты, ядро, вакуоли, кристаллики гипса и слизистые тельца.
Симметрия очертаний клеток и украшений оболочки у десмидиевых отражается на симметрии протопласта. Симметрично расположены и хлоропласты, что является отличительным признаком десмидиевых водорослей.
Хлоропласты. У десмидиевых водорослей хлоропласты бывают двух типов: осевые (или центральные) и постенные. У большинства видов встречается осевой хлоропласт, причем почти всегда по одному в каждой полуклетке. Однако у нескольких очень мелких форм, принадлежащих к роду космариум, и у некоторых других в центре каждой клетки имеется только один простой хлоропласт с одним пиреноидом. Хлоропласты имеют обычно густо-зеленый цвет и бывают очень разнообразной формы. Они могут иметь вид звездообразных тел (пениум), осевых конусов с радиальными пластинками (клостериум), стенкоположных лент (плеуротениум), осевых тел с радиальными лучами (космариум) и т. д. (рис. 253).
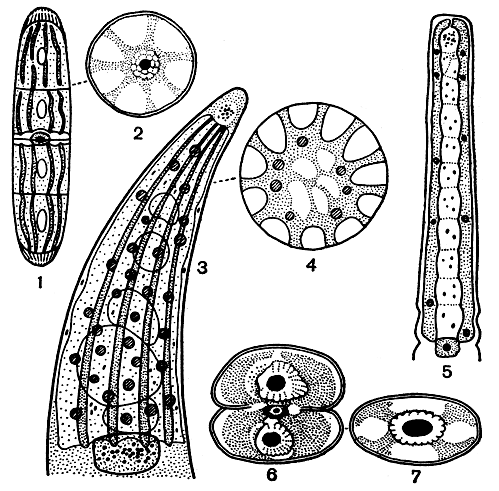
Рис. 253. Хлоропласты десмидиевых водорослей: 1, 2 - Penium spirostriolatum; 3, 4 - Closterium ehrenbergii; 5 - Pleurotaenium trabecula; 6, 7 - Cosmarium depressum (2, 4, 7 - вид на поперечном разрезе)
Постенные хлоропласты встречаются реже, чем осевые, и преимущественно у более крупных форм. У некоторых представителей, особенно из родов эуаструм и микрастериас, имеющих осевые хлоропласты, наблюдается тенденция к развитию и постенных хлоропластов. Центральная часть хлоропласта становится у них более тонкой и исчезает совсем, тогда как периферическая часть развивается очень хорошо. Иногда цельные пластинки хлоропластов в периферической части клеток разделяются на дольки или многочисленные короткие отростки, направленные вперед к оболочке клеток. Благодаря этому площадь хлоропласта значительно увеличивается, что улучшает восприятие света клеткой. Величина и характер расчленения хлоропласта могут быть различными у разных особей одного и того же вида в зависимости от условий их существования. При хорошем питании и освещении клеток хлоропласт хорошо развит и клетки окрашены в темно-зеленый цвет. В неблагоприятных условиях (при недостаточном количестве питательных веществ, при отсутствии или, наоборот, большом избытке какого-нибудь одного вещества) хлоропласты развиваются слабо, преимущественно у стенок клетки. В таком случае клетки имеют бледно-зеленый или желтоватый цвет.
На внешний вид хлоропласта сильно влияет также количество крахмала, содержащегося в нем в виде свободных крахмальных зерен. Их иногда хорошо видно в живых клетках, но еще легче можно обнаружить, если окрасить клетку раствором йода, который вызывает посинение крахмала. Крахмальные зерна образуются и располагаются в основном вокруг пиреноидов. Они могут равномерно покрывать поверхность пиреноида или же располагаться на некотором расстоянии друг от друга. Иногда зерна крахмала возникают в строме хлоропласта. Если крахмала очень мало, то хлоропласт имеет тонкую и плотную структуру и кажется гладким. Иногда крахмала в хлоропласте бывает очень много, и в этих случаях хлоропласт становится массивнее, приобретает более грубую структуру и гранулированный внешний вид. При некоторых условиях крахмальные зерна выбрасываются из пиреноидов в больших количествах и распространяются по хлоропласту. Тогда хлоропласт в результате разбухания крахмальных зерен увеличивается в несколько раз, его структура нарушается и он становится бесформенной массой. Это явление иногда вызывает замечательное разнообразие формы хлоропласта, особенно у видов клостериума, у которых относительная величина центральных осевых и радиальных ребер хлоропласта в большой степени зависит от количества присутствующего крахмала. Количество и положение хлоропластов имеют большое значение для определения некоторых видов и родов десмидиевых.
Количество и положение пиреноидов сильно варьируют у разных представителей десмидиевых и зависят от формы хлоропласта и условий существования клетки. У представителей большинства видов, имеющих крупные постенные хлоропласты, пиреноиды разбросаны без определенного порядка, порой малозаметны. Если виды имеют осевой хлоропласт, пиреноиды обычно находятся в тех частях клетки, в которых хлоропласт наиболее массивен. Количество пиреноидов, внедренных в ось осевого хлоропласта, зависит от его величины. У некоторых видов микрастериаса их может быть более ста, а у мелких видов обычно имеется только один пиреноид. В зависимости от массы накопленных питательных веществ количество пиреноидов изменяется.
Ядро. Десмидиевые водоросли - одноядерные организмы. Только иногда при нарушениях процессов деления клетки образуются урод-ливые формы, которые обладают двумя и большим количеством ядер.
Ядро у большинства видов десмидиевых занимает центральное положение, располагаясь посередине между хлоропластами двух полуклеток у неперешнурованных видов или в перешейке у перешнурованных видов. Величина ядра может колебаться от нескольких до 50 мкм в поперечнике. Ядро может иметь шаровидно-эллипсоидную, квадратную или прямоугольную форму. Ядра содержат одно или несколько ядрышек шаровидной формы. У разных видов число ядрышек и их величина зависят от величины клетки.
Вакуоли. Для протопласта десмидиевых характерны вакуоли. Обычно они содержат кристаллики гипса или слизистые тельца пектиновой природы. У тех форм, которые имеют постенные хлоропласты, эти вакуоли изредка размещены в цитоплазме, но у видов клостериума они могут оказаться в углублениях между продольными радиальными ребрами хлоропласта. Кроме того, здесь имеются также хорошо заметные вакуоли на концах клеток, содержащие, как правило, один или несколько кристалликов гипса. У видов космариума вакуоли размещены между хлоропластами обеих полуклеток в области перешейка.
При нормальных условиях число и расположение вакуолей у одного и того же вида бывают очень постоянными. В большинстве случаев в каждой полуклетке десмидиевых имеются одна крупная (основная) вакуоля и несколько более мелких вакуолей. Величина одних вакуолей может увеличиваться за счет слияния их с другими. При некоторых ненормальных условиях жизни протоплазма клеток десмидиевых может образовывать многочисленные вакуоли, иногда очень значительных размеров.
Вакуольная система десмидиевых послужила предметом многих исследований, но ее полное значение и возможная роль еще до сих пор не совсем ясны. Особенно разнообразные мнения были высказаны по поводу природы и назначения кристаллов гипса в вакуолях на концах клеток. Эти кристаллы находятся в постоянном броуновском движении. Число их в вакуолях зависит от возраста клеток и может изменяться под влиянием различных факторов окружающей среды. Иногда их бывает 1, 2, но не больше 10; в других случаях насчитывали более 40 кристаллов в каждой вакуоле. Во время деления клетки кристаллы гипса могут полностью исчезать.
В вакуолях многих десмидиевых встречаются еще особые слизистые тельца, имеющие вид маленьких подвижных зерен. Эти тельца состоят из органического вещества, так как при нагревании до +64 °С, а также в кислотах и щелочах они растворяются. По-видимому, они представляют собой запасные питательные вещества, связанные каким-то образом с выделением слизи.
Размножение десмидиевых осуществляется вегетативным и половым путем.
Вегетативное размножение. Деление десмидиевых можно хорошо проследить на примере рода космариум. Сначала ядро, лежащее в районе перешейка, делится, образуя два ядра, которые расходятся к центрам обеих полуклеток. После того как ядра передвинулись в полуклетки, в середине перешейка образуется перегородка, тесно примыкающая своими краями к внутреннему слою оболочки (рис. 254, 1). Затем область перешейка вытягивается, в результате чего две старые полуклетки отделяются одна от другой (рис. 254, 2). Верхняя и нижняя части перешейка, лежащие по обеим сторонам поперечной перегородки, начинают раздуваться в виде пузырька, увеличиваться в размерах, после чего наступает расщепление самой перегородки (рис. 254, 3). Образовавшиеся из раздувшихся частей перешейка молодые полуклетки начинают быстро расти и достигают нормального облика, оставаясь соединенными друг с другом своими вершинами (рис. 254, 4, 5). Когда клетки достигают зрелого возраста, их оболочка, являющая собой временное образование, отбрасывается и отпадает, наподобие линяющей кожи. Тогда клетки окончательно разъединяются и начинают самостоятельное существование.
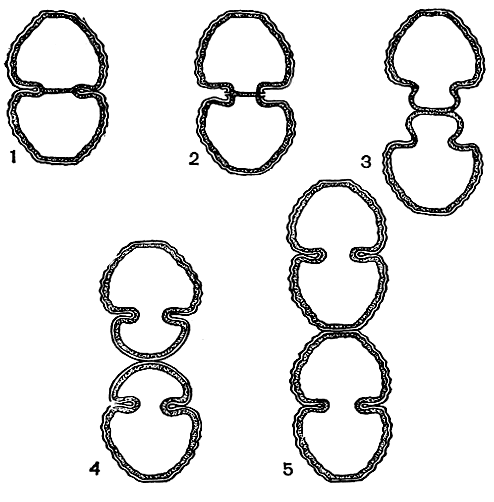
Рис. 254. Схема вегетативного деления клетки десмидиевых водорослей: 1-5 - последовательные стадии деления
Таким образом, как уже упоминалось, в каждой клетке оказываются более старая и более молодая полуклетки. На самых ранних стадиях развития содержимое молодых полуклеток бывает совершенно прозрачным, поэтому клеточные ядра, лежащие в области перешейка, бывают хорошо видны даже без специального окрашивания. Потом протоплазма становится густозернистой, заполняется вакуолями. Наконец, хлоропласты старых полуклеток удлиняются, делятся, и один из них переходит в молодую полуклетку. Иногда клетки после окончательного деления и завершения роста не распадаются, а образуют ложные нити, которые, однако, легко разрываются. В некоторых случаях ложные нити образуются путем сцепления верхушечных отростков и лопастей.
У неперешнурованных форм, как, например, у представителей родов клостериум или пениум, клеточное деление происходит еще более сложным образом.
Половое размножение. Как и у других представителей класса, конъюгация десмидиевых совершается безжгутиковыми апланогаметами, которые выполняют функцию половых клеток. Гаметы двух клеток сливаются, образуя зиготу. Зиготы известны для многих представителей десмидиевых, но подробности полового процесса были зарегистрированы только у нескольких видов. Это связано с тем, что половой процесс у этих водорослей довольно редко встречается в природе, а культивирование их до сих пор было малоуспешным.
У одного из видов космариума половой процесс начинается так: пары клеток с различным половым знаком располагаются рядом перпендикулярно одна к другой и выделяют слизь, которая их полностью окутывает (рис. 255, 1). Некоторое время спаренные клетки лежат рядом, но к началу слияния гамет отодвигаются друг от друга. Первым симптомом наступающего слияния гамет является выработка копулирующими клетками цитоплазматических бугорков. Бугорки увеличиваются, растут навстречу друг другу и наконец соприкасаются, образуя копуляционный канал (рис. 255, 2). Весь процесс длится в течение 1 ч. Как только бугорки соприкоснулись, протопласты обеих клеток начинают отделяться от клеточных стенок и двигаться к общему центру в копуляционный канал (рис. 255, 3, 4). К этому времени в каждой клетке в районе перешейка образуется отверстие, которое расширяется при выходе гаметы. Отделение протопласта от стенок обычно продолжается 13-25 мин. Через 4-7 мин, после того как протопласты соприкоснулись, слияние заканчивается и между пустыми оболочками образуется зигота не правильной формы (рис. 255, 5, 6). Иногда гаметы не отделяются полностью от оболочек клеток, и в таких случаях образовавшаяся зигота бывает прочно прикреплена к пустым оболочкам клеток.
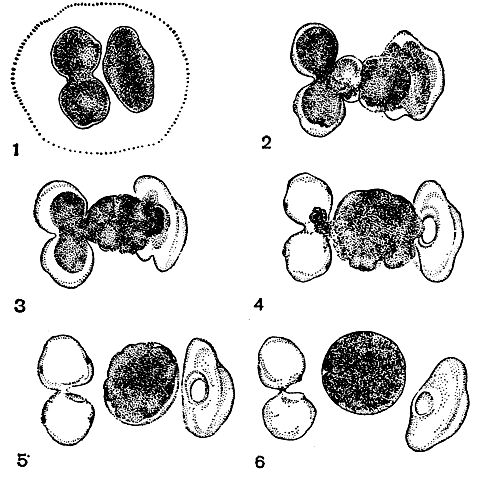
Рис. 255. Различные стадии конъюгации у Cosmarium botrytis: 1 - ранняя стадия (одна клетка лежит боком, другая - в поперечной плоскости, вид сверху); 2 - выработка копуляционного канала и начало копуляции; 3, 4 - слияние содержимого обеих клеток; 5, 6 - формирование зиготы
В первые минуты образования зиготы в ней появляются многочисленные сокращающиеся вакуоли. Маленькие вакуоли сливаются в более крупные. Каждая вакуоля пульсирует в течение 4-7 мин, затем сжимается, и ее содержимое выходит наружу. Действие пульсирующих вакуолей длится от 4 до 32 мин, до тех пор пока прозрачные места зиготы перестают быть видимыми. За этот период (от 1 до 3,5 ч) зигота значительно сокращается. Внутри ее хлоропласты и пиреноиды располагаются в периферическом слое. Затем начинают появляться первые признаки орнаментации зиготы - конусовидные бугорки, разбросанные по ее поверхности. Постепенно они вытягиваются и приобретают вид шипов. За время разрастания шипов, которое продолжается 2-3 ч, зигота опять увеличивается в размерах и становится такой же, как при слиянии гамет.
До окончания роста шипов зигота сохраняет цитоплазматическую оболочку. Когда шипы полностью сформируются, происходит быстрое изменение в их преломляющем индексе, что говорит о том, что в это время образуется новый слой оболочки. В зр