



19. Отдел 10. Зеленые водоросли - Chlorophyta (Chlorophycophyta, Chlorophyceae, Chlorobionta, Viridiplantae)
19.1. Общая характеристика (Н. П. Масюк)
Отдел объединяет свыше 20000 видов микро- и макроскопических эукариотических водорослей, по окраске напоминающих высшие растения. Мельчайшие (например, Micromonas pusilla (Butch.) Manton et Parke) граничат по размерам с бактериальными клетками, не превышая нескольких микрометров в диаметре, наиболее крупные - харовые - достигают - 2 м в высоту. Представлены одноклеточные, колониальные (в т. ч. ценобиальные), многоклеточные и неклеточные индивиды, активно подвижные и неподвижные, прикрепленные и свободноживущие, а также все типы структуры вегетативного тела от монадного до паренхиматозного, исключая амебоидный (рис. 19.1).
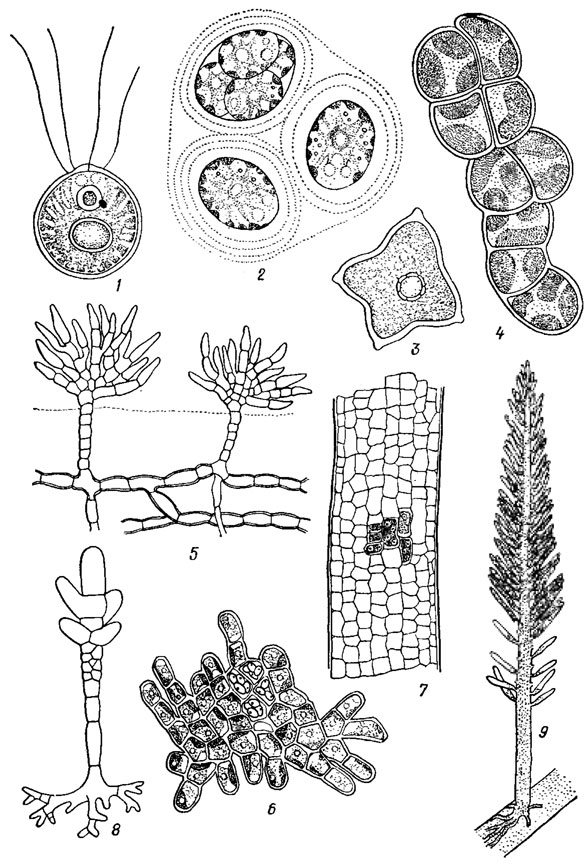
Рис. 19.1. Типы структуры вегетативного тела зеленых водорослей: 1 - монадный (Carteria radiosa Korsch.); 2 - гемимонадный (Asterococcus superbus (Cienk.) Scherff.); 3 - коккоидный (Tetraedron minimum (A. Br.) Hansg.); 4 - нитчатый (Pleurochloris vulgaris Menegh.); 5 - разнонитчатый (Fritschiella tuberosa Iyengar); 6 - псевдопаренхиматозный (Protoderma viride Kütz.); 7 - паренхиматозный (Enteromorpha pilifera Kütz.); 8 - сифонокладальный (Siphonocladus pusillus (Kütz.) Hauck.); 9 - сифональный (Bryopsis Lamour.)
Строение клетки и клеточные покровы разнообразны. У некоторых клетки окружены лишь плазмалеммой (Quadricnloris Fott), у других снабжены дополнительными образованиями в виде субмикроскопических чешуек (Prasinophyceae Chad.) или структур, напоминающих перипласт [279]. Такие клетки метаболичны. У большинства зеленых водорослей образуются клеточные оболочки, сохраняющие более или менее постоянную форму клеток. В световом микроскопе в оболочке многих зеленых водорослей видны два слоя - внутренний, более плотный, обычно целлюлозный и наружный, пектиновый. Клеточная оболочка Haematococcus С. A. Ag. по данным электронной микроскопии, состоит из четырех слоев, Chlamydomonas reinhardtii Dang. - из семи, Pleurotaenium nodosum (Bailey) Lund - из многочисленных слоев. Она представлена аморфным матриксом и погруженными в него микрофибриллами целлюлозной природы, количество и ориентация которых меняются от слоя к слою.
Клеточная оболочка может составлять до 39,2% сухой массы клетки (Hydrodictyon Roth); 7,2% этого количества приходится на жиры, остальное - на белки и углеводы. Целлюлоза - основной компонент клеточной оболочки большинства зеленых водорослей. Однако у Chlamydomonas Ehr. она отсутствует; в состав клеточных оболочек у этого рода входит гликопротеин. Протеин в оболочках других зеленых водорослей составляет 10-69% их массы. У Prasinophyceae оболочки состоят из пектина, галактозы и арабинозы. Основную часть клеточных оболочек Pleurotaenium Näg. слагают глюкоза, галактоза, ксилоза, арабиноза, глюкуроновая и галактуроновая кислоты. У Bryopsidalps оболочки состоят из маннанов и ксиланов, причем у спорофитов преобладает маннан, у гаметофитов - ксилан и целлюлоза. В клеточных оболочках Chara L., Pediastrum Meyen, Chlorella Beijer., помимо внутреннего целлюлозного, обнаружен спорополлениновый слой, состоящий из окисленных полимеров каротина и (или) каротиноидных эфиров, которые входят в состав клеточных оболочек спор и пыльцы высших растений. Попытки обобщения данных о химическом составе клеточных оболочек и использования их в систематических целях затрудняются недостаточной изученностью зеленых водорослей и отсутствием необходимого количества сравнительного материала [385, 393].
Оболочки могут быть инкрустированы солями железа (Phacotaceae) или кальция (Charophyceae, Bryopsidales). У видов рода Oedogonium Link на поверхности оболочки выделяется дополнительный твердый покров (кутикула), состоящий из кутина.
Клеточная оболочка обычно цельная, реже состоит из двух - нескольких фрагментов (Microspora Thur., Desmatractum West, Desmidiales). На поверхности оболочки нередко образуются разнообразные выросты, шипы, щетинки, гранулы, бородавки (см. рис. 19.17), выполняющие защитную функцию и облегчающие парение в воде.
Обмен клеток с окружающей средой происходит через поры, образующиеся вследствие неполного смыкания оболочек при цитокинезе (первичные) или под воздействием ферментов (вторичные поры). Диаметр пор у Desmidiales 12-20 нм. У некоторых колониальных (Volvox L., Pediastrum) и многоклеточных (Ulotrichales, Oedogoniales) зеленых водорослей через поры связь между соседними клетками осуществляется посредством плазмодесм, у других - через поры выделяется слизь, способствующая образованию колоний (Hormotila Borzi, Palmodictyon Kütz.) или активному перемещению организма в пространстве (Closterium Nitzsch.). У некоторых представителей порядка Volvocales слизь окружает протопласт внутри клеточной оболочки (Haematococcus С. A. Ag.). Нередко слизь возникает вследствие ослизнения клеточных оболочек (Botryococcus Kütz.). Образование слизистых капсул вокруг клеток свойственно конъюгатам. Иногда (Chlamydomonas, Ulothrix Kütz.) при неблагоприятных условиях наблюдается временное ослизнение клеточных оболочек и переход в пальмеллевидное состояние.
У некоторых Prasinophyceae обнаружены стрекательные структуры, напоминающие эджектосомы криптомонад.
Клетки содержат от одного (Chlamydomonas) до нескольких сотен (Cladophora Kütz.) ядер; размеры их колеблются от одного (Chlorella, Chlorococcum Menegh., Oocystis Näg.) до 45 мкм (Bryopsis halimeniae Berth.), форма обычно шаровидная или линзовидная. В нуклеоплазме от 1 до 100 (Micrasterias thomasiana Arch.) ядрышек; число, форма и размеры их изменяются на протяжении клеточного цикла. Многообразие интерфазных ядер проявляется в соотношении объема ядрышка и нуклеоплазмы, степени спирализации хромосом. Наряду с типичными картинами митоза выявлены разнообразные отклонения, связанные с разной степенью выраженности веретена деления, наличием или отсутствием центриолей, поведением ядер ной оболочки и ядрышка, микротрубочек веретена. Иногда наблюдается внутриядерный митоз. В ядрах Spirogyra Link ядрышки во время митоза диспергируют, маскируя их содержимое [279, 3911. У зеленых водорослей наблюдается значительно большее разнообразие картин митоза по сравнению с высшими растениями [278].
Хлоропласты разнообразны по форме, размерам, положению в клетке. Их количество варьирует от одного (многие виды Chlamydomonas) до нескольких десятков (Sphaeroplea Ag.) или сотен (Cladophora) в клетке. По форме различают чашевидные, пластинчатые, корытовидные, лентовидные, дисковидные, сетчатые, губчатые, звездчатые хлоропласты, по положению - пристенные и осевые (центральные) (рис. 19.2). Хлоропласты окружены двухмембранной оболочкой, не связанной с каналом эндоплазматического ретикулюма и ядерной оболочкой; тилакоиды в группах по 2-6 или в плотных стопках, напоминающих граны высших растений [391].
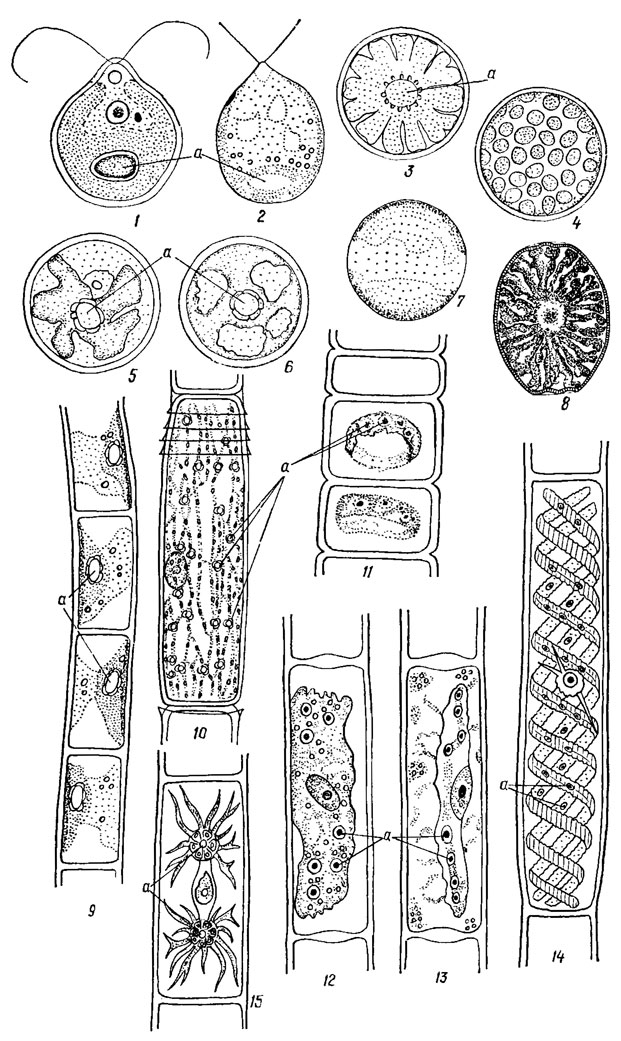
Рис. 19.2. Хлоропласты зеленых водорослей: 1 - чашевидный с базальным пиреноидом (Chlamydomonas proboscigera Korsch.); 2 - чашевидный перфорированный с базальным пиреноидом (Dunallella carpatica Massjuk); 3 - звездчатый, осевой с центральным пиреноидом (Radiosphaera dissecta (Korsch.) Starr); 4 - пристенные дисковидные без пиреноидов (Bracteacoccus sp.); 5 - асимметрично звездчатый, осевой с центральным пиреноидом (Axylosphaera vegetata Cox et Deas.); 6 - губчатый с центральным пиреноидом (Neospongiococcum punctatum (Arcet et Bold) Deas.); 7 - пристенный, разделенный надвое трещиной, без пиреноидов (Lobococcus macronucfeatus (Peas.) Bourr.); 8 - радиально расположенные, лентовидные (Oocystis gigas Arch. var. incrassata W. et G. S. West sensu Skuja); 9 - пристенный полуцилиндрический с пиреноидами (Chlorhormidium flaccidum (Kütz.) Fott); 10 - пристенный, сетчатый с многочисленными пиреноидами (Oedogonium crassum (Hass.) Wittr.); 11 - кольцевидный со многими пиреноидами (Ulothrix zonata (Web. et Mohr.) Kütz.); 12, 13 - осевые, пластинчатые с несколькими пиреноидами (Mougeotla sp.); 14 - три пристенных, лентовидных, спиралевидно изогнутых хлоропласта с пиреноидами (Spirogyra sp.); 15 - два осевых, звездчатых хлоропласта с пиреноидами (Zygnema sp.); а - пиреноид
Хлоропласты обычно окрашены в различные оттенки зеленого цвета. Окраска обусловлена наличием хлорофиллов а и b, α-, β-, γ-, ξ-каротинов и их окисленных производных - ксантофиллов: лютеина, неоксантина, виолаксантина, зеаксантина, антераксантина. У некоторых зеленых водорослей обнаружен криптоксантин, представителям Siphonophyceae свойственны сифоненн и сифоноксантин, у Prasinophyceae выявлены микронон и ликопин, последний отмечен и у Charophyceae. По составу фотосинтетических пигментов зеленые водоросли близки к высшим растениям. В неблагоприятных условиях (недостаток биогенных элементов, повышение концентрации хлористого натрия и др.) соотношение основных групп пигментов в вегетативных клетках некоторых зеленых водорослей изменяется в пользу каротиноидов, водоросли приобретают оранжево-красную окраску (Trentepohlia Mart., Dunaliella salina Teod., Chlamydomonas nivalis (Bauer) Wille), отдельные представители способны накапливать вторичные каротиноиды: эхиненон, каитаксантин, астаксантин, астацин (Chlorococcum, Spongiochloris Starr, Dunaliella pseudosalina Massjuk et Radch.). Подобные изменения пигментации нередко наблюдаются в покоящихся клетках - зиготах, акинетах. Способность к синтезу вторичных каротиноидов используется в таксономических целях на низших таксономических уровнях [195, 502 и др.]. У некоторых зеленых водорослей наблюдается утрата фотосинтетических пигментов (апохлороз) при сохранении в клетках бесцветных лейкопластов (Polytomella Aragao, Tetrablepharis Senn, Hyalogonium Pasch.), а иногда н утрата пластид - апопластия (Polytoma Ehr., Hyalobrachion Swindell, Hyaliella Pasch.). Функцию хлоропластов в бесцветных клетках могут выполнять внутриклеточные симбиотические синезеленые водоросли - цианеллы (Hyalocardium printzii (Schill.) Ettl, Gloeochaete wittrockiana Lagerch., Glaucocystis nostochinearum Itz.). У Dasycladaceae наряду с хлоропластами присутствуют амилопласты.
Хлоропласты обычно содержат от одного до нескольких десятков (Draparnaldia Bory, Cladophora Kütz.) погруженных пиреноидов. Их число и локализация в пластиде обычно видоспецнфичны. Ламеллярная система хлоропласта нередко проникает в пиреноид (Pyramimonas Schmarda, Cosmarium Corda, Mougeotia Ag.), у иных (Scenedesmus quadricauda (Turp.) Breb., Oedogonium cardiacum Wittr., Chlamydomonas chlamydogama Bold) пиреноиды лишены ламеллярной системы. Попытки связать особенности тонкого строения пиреноида с систематическим положением объекта пока не увенчались успехом. Только у одного рода Ulothrix наблюдается 8 типов пиреноидов [540]. Полагают, что пиреноид зеленых водорослей является ферментативным центром, продуцирующим энзимы, полимеризующие молекулы глюкозы* в крахмал - основной продукт ассимиляции зеленых водорослей**. Крахмал образует вокруг пиреноида сплошную или состоящую из отдельных зерен обкладку. Наличие светопреломляющей крахмальной обкладки облегчает обнаружение пиреноида. Пиреноиды некоторых зеленых водорослей (Monoraphidium mirabile (W. et G. S. West) Pankow, Kirchneriella Schmidle, Ankistrodesmus Corda) лишены крахмальной обкладки, и выявить их гораздо труднее.
* (Основные ассимиляты зеленых водорослей - глюкоза, фруктоза и сахароза. Prasinophyceae синтезируют маннитол и глюкозоманнитол, для аэрофитных водорослей (Trentepohlla Mart. и др.) характерны сахарные спирты.)
** (Крахмал зеленых водорослей (α-1, 4-глюкан), как и у высших растений, состоит из амилозы и амилопектина (в различных пропорциях). Лишь у Dasycladaceae вместо крахмала откладывается инулин и близкие полифруктозиды. Кроме крахмала зеленые водоросли могут накапливать масло, иногда в большом количестве, маскирующем наличие крахмала (Botryococcus braunii Kütz.). Гипергалобная водоросль Dunaliella salina Teod. в больших количествах синтезирует глицерин.)
Крахмал может откладываться вне связи с пиреноидом; локализация его в клетках зеленых водорослей, как и высших растений, строго приурочена к пластидам. Лишь у Dasycladaceae запасные полисахариды могут откладываться за пределами пластид. Пиреноиды воспроизводятся делением надвое или фрагментацией. Обычно деление их по времени совпадает с завершением митоза, делением пластид и клетки, хотя не исключены отклонения. При спорогенезе наблюдается новообразование пиреноидов, которому предшествует исчезновение старого пиреноида.
У монадных форм и стадий зеленых водорослей, а также у некоторых гемимонадных, филогенетически связанных с монадными предками, имеется стигма, являющаяся частью хлоропласта. Стигма в виде небольшого красного пятна расположена в передней части клетки, реже медиально. Она состоит из одного - нескольких слоев пигментированных глобул, расположенных у поверхности хлоропласта, прилегающей к поверхностным покровам клетки, и разделенных тилакоидами (см. рис. 1.34). У Chlamydomonas Ehr. стигма состоит из 15-45 электронно-плотных гранул 75-100 нм каждая, которые тесно прилегают друг к другу, образуя один слой. Место фоторецептора в клетках зеленых водорослей с точностью не установлено. В настоящее время считают, что функцию фоторецепции выполняет участок наружной мембраны хлоропластной оболочки или плазмалеммы, прилегающий к стигме и отличающийся от соседних участков мембраны, стигме же отводят вспомогательную роль в фоторецепции. В пользу этого свидетельствует способность к фототопотаксису некоторых монадных форм и стадий зеленых водорослей, лишенных стигмы (зооспоры Chlorhormidium flaccidum (Kütz.) Fott. мужские гаметы Bryopsis hypnoides Lamour., мутанты Chlamydomonas Ehr.).
Монадные формы и стадии обычно снабжены 2-4 изоморфными (акронематическими), изоконтными, изодинамическими жгутиками (Dunaliella Teod., Chlamydomonas, Carteria Dies.) (рис. 19.3). Количество Жгутиков может варьировать от одного (Pedinomonas Korsch.) до многих (монадные стадии Oedogonium, зооспоры Derbesia Sol.). Наряду с гладкими акронематическими наблюдаются плевронематические жгутики, покрытые одним (Haematococcus) или большим количеством рядов мастигонем (Tetraselmis Stein, Pedinomonas Korsch.). Жгутики Prasinophyceae и Charophyceae покрыты субмикроскопическими чешуйками. У Nephroselmis Stein и Trichloris Scherff. et Pasch. жгутики гетероконтные и гетеродинамические. Жгутики прикрепляются апикально, реже субапикально к морфологически переднему концу клетки, который не всегда соответствует переднему по ходу движения концу клетки. Иногда жгутики выходят из апикальной жгутиковой ямки (Tetraselmis) (рис. 19.3, 4) или субапикального желобковидного углубления. Аксонема жгутиков имеет типичное для эукариот расположение микротрубочек (структура "9 + 2"). В месте погружения жгутиков в клетку периферические дуплеты микротрубочек замещаются триплетами, образующими базальные тела. В переходной зоне жгутика имеется комплекс структур, соединяющих дуплеты микротрубочек, которые в поперечном сечении образуют звездчатую фигуру. Базальные тела располагаются под углом 90 или 180°. Они соединены поперечно исчерченной или неисчерченной перемычкой (рис. 19.4). С базальными телами связаны три типа структур: корни, ризопласты и многослойные структуры, расположенные в цитоплазме (см. рис. 19.4). Корни имеют микротрубчатую, ризопласт - микрофибриллярную, поперечно полосатую структуру. Ризопласт может быть связан с ядром. Многослойная структура, обнаруженная, например, у Charophyceae, Coleochaete Breb. - сложно организованная группа микротрубочек, расположенных вблизи от базальных тел; она напоминает таковую в подвижных репродуктивных клетках некоторых высших растений. От многослойной структуры отходит унилатеральный микротрубчатый корень (см. рис. 19.4).
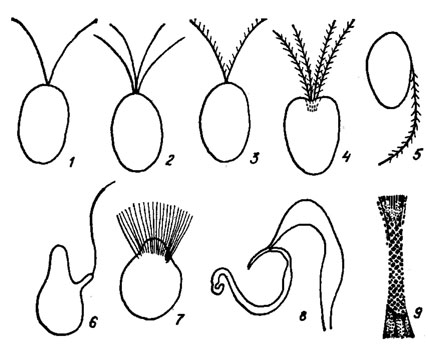
Рис. 19.3. Жгутики зеленых водорослей: 1 - Chlamydomonas Ehr.; 2 - Carteria Dies.; 3 - Haematococcus С. A. Ag.; 4 - Tetraselmis Stein; 5 - Pedinomonas Korsch.; 6 - Micromonas Manton et Parke; 7 - Oedogonium Link (зооспоры, андроспоры, антерозоиды); 8 - Chara (Vaill.) L. (антерозоиды); 9 - субмикроскопические чешуйки на жгутике антерозоида Chara (Vaill.) L
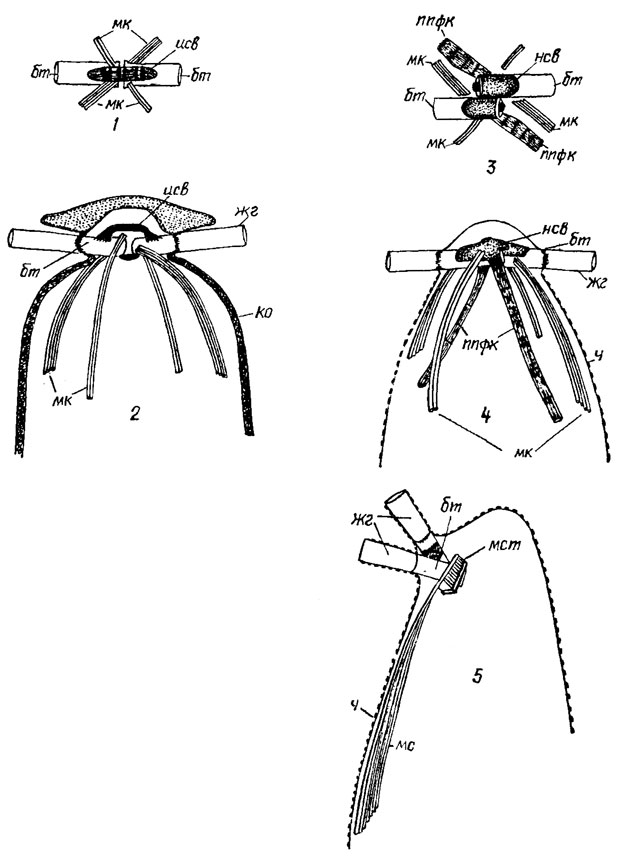
Рис. 19.4. Организация жгутикового аппарата монадных форм и стадий зеленых водорослей из классов Chlorophyceae s. str. (1, 2), Ulvophyceae (3, 4), Charophyceae (5), вид сверху (1, 3) и сбоку (2, 4, 5): бт - базальное тело; мк - микротрубчатые корни; исв - исчерченное соединительное волокно; жг - жгутик; ко - клеточная оболочка; ппфк - поперечно-полосатый фиброзный корень; нсв - неисчерченное соединительное волокно; лес - микротрубчатый сплин; мст - многослойная структура; ч - чешуйки
У основания жгутиков монадных форм и стадий находятся диктиосомы (аппарат Гольджи). В неподвижных клетках диктиосомы обычно располагаются вокруг ядра; у Bryopsidales - преимущественно в меристоплазме. В клетках Pediastrum Meyen, Tetracystis Brown et Bold, Chlorella они заключены в выросты наружной мембраны ядерной оболочки - амплексы. Размеры диктиосом колеблются от 0,7 (Spirogyra) до 20 мкм (Cladophora). Число цистерн в диктиосоме у Cosmarium и Closterium 8-12, у Oocystis 12-16. Диктиосомы участвуют в синтезе клеточных покровов, в секреторной деятельности клетки, возможно, в образовании лизосом.
Число митохондрий в клетках колеблется от одной (Chlorella, Chlamydomonas noctigama Korsch.) до нескольких и может изменяться в онтогенезе. Размеры митохондрий варьируют в пределах одного растения, иногда достигая больших значений (Bryopsis Lamour.). Митохондрии зеленых водорослей имеют пластинчатые кристы. Являясь источником энергии, митохондрии располагаются в активных центрах клетки.
Разветвленная система канальцев эндоплазматического ретикулюма располагается в клетках неравномерно, концентрируясь возле стигмы (Volvox) или вокруг хлоропласта и диктиосом (Closterium littorale Gay), на периферии клетки, вдоль плазмалеммы (Fritschiella Iyengar, Chlorella), либо вокруг ядра, образуя дополнительную перинуклеарную оболочку (Hydrodictyon, Kirchneriella, Tetrasdron Kütz.). Установлена связь эндоплазматического ретикулюма с комплексом Гольджи, митохондриями и хлоропластом, иногда наблюдается контакт с наружной мембраной в ядерной оболочке. У водорослей монадной и гемимонадной структуры наблюдаются сократительные вакуоли, число и распределение которых в клетке видоспецифичны, у остальных - вакуоли с клеточным соком (тонопласт), нередко занимающие в клетке центральное положение (Spirogyra). В цитоплазме обнаружены лизосомы, пероксисомы, сферосомы, ирисовые тела, ломасомы, а также система микротрубочек, существенно не отличающаяся от таковой у представителей других отделов.
В зависимости от степени согласованности процессов митоза и цитокинеза наблюдается последовательное (в вегетативных клетках Chlamydomonas Ehr., Ulothrix Kütz., Spirogyra Link), одновременное (обычно в спорангиях, гаметангиях) и сегментационное (в вегетативных клетках Siphonocladales) клеточное деление (рис. 19.5). Цитокинез осуществляется перетяжкой (кольцевой бороздой) или с помощью клеточной пластинки, формирование которой происходит по типу фико- или фрагмопласта (рис. 19.6). Деление с помощью фрагмопластоподобных структур, напоминающих таковые высших растений (см. рис. 19.6, 4), наблюдается у Chlorhormidium Fott, Coleochaete, Charophyceae, рассматриваемых в качестве представителей прогрессивной линии эволюции зеленых водорослей [589, 660, 661 и др.].
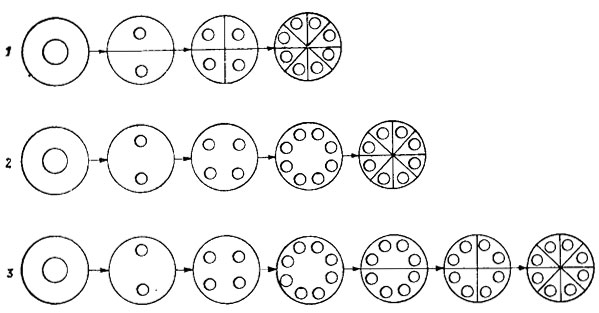
Рис. 19.5. Способы клеточного деления зеленых водорослей: 1 - последовательное, или сукцессивное; 2 - одновременное, или симультанное; 3 - сегментационное, или сегрегативное
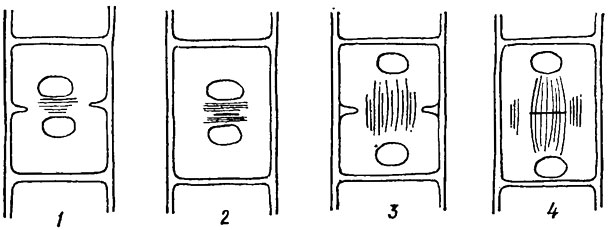
Рис. 19.6. Способы деления клеток зеленых водорослей: 1, 2 - веретено деления отсутствует, ядра сближены (1 - деление кольцевой бороздой с участием фикопласта; 2 - деление с помощью клеточной пластинки, образующейся по типу фикопласта); 3, 4 - веретено деления сохраняется, ядра отдалены друг от друга (3 - деление кольцевой бороздой; 4 - деление с помощью клеточной пластинки, образующейся по типу фрагмопласта)
Размножаются зеленые водоросли половым и бесполым путем, с помощью вегетативных и специализированных клеток. Бесполое (вегетативное) размножение у одноклеточных, лишенных клеточной оболочки, происходит делением клетки надвое (например, Pedinomonas, Dunaliella), у колониальных (неценобиальных) и многоклеточных - фрагментацией таллома (Raciborskiella Wisl., Dictyosphaerium Näg., Botryococcus, Chlorhormidium; рис. 19.7). Ценобиальные (Volvox, Hydrodictyon, Scenedesmus Meyen) образуют дочерные ценобии внутри клеток материнского ценобия (рис. 19.8). Многие размножаются с помощью акинет (Pithophora Wittr., Chlorhormidium; см. рис. 19.7). У Charophyceae из узловых клеток таллома могут возникать новые растения, отчленяющиеся от материнского, наблюдаются также специальные органы вегетативного размножения - одно- и многоклеточные корневые и стеблевые клубеньки.
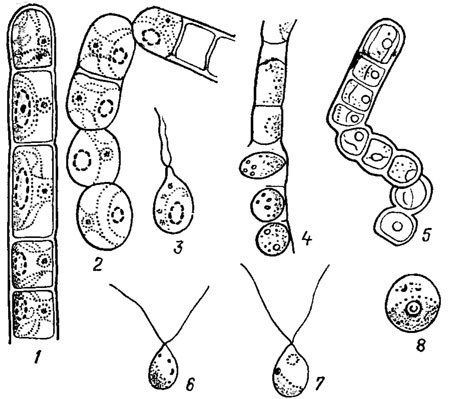
Рис. 19.7. Различные способы размножения видов рода Chlorhormidium Fott: 1 - участок вегетативной нити; 2 - фрагментация нити; 3 - зооспора; 4 - образование апланоспор; 5 - образование акинет; 6 - микрогамета; 7 - макрогамета; 8 - зигота
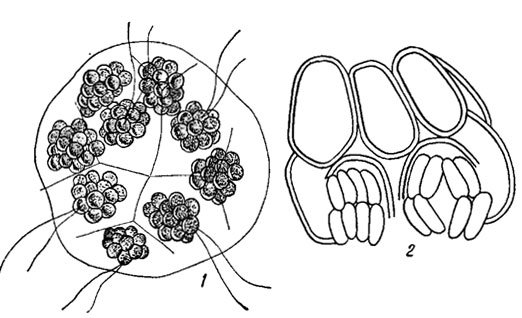
Рис. 19.8. Бесполое размножение ценобиальных зеленых водорослей: 1 - Voivulina steinii Playf.; 2 - Scenedesmus obfusus Meyen f. aiternans (Reinsch) Comp
Бесполое размножение с помощью специализированных клеток - спор - широко представлено у многих зеленых водорослей, нередко наряду с вегетативным и половым размножением (см. рис. 19.7). Иногда образование спор является единственным способом размножения (Chlorella), у некоторых споры отсутствуют (Charа). Споры зеленых водорослей бывают подвижными (зооспоры) и неподвижными (апланоспоры) (рис. 19.9; см. рис. 19.7). Наблюдается также образование автоспор, гипноспор, гемизооспор и гемиавтоспор. Споры бывают шаровидными, яйцевидными, эллипсоидными, с клеточной оболочкой или без нее. Зооспоры обычно имеют 2-4 изоморфных (акронематических), изоконтных, изодинамических жгутика. У Oedogoniales и некоторых Bryopsidales зооспоры (андроспоры) с многочисленными жгутиками, расположенными венцом у переднего конца клетки (см. рис. 19.9, 10). Наблюдаются и другие отклонения от обычного строения жгутикового аппарата; обнаружены разные типы тонкой структуры жгутиковой корневой системы. Считают, что различия в строении спор (а также гамет) в известной мере отражают различия в строении предков соответствующих таксонов. Спорангии одноклеточные, обычно не отличающиеся от вегетативных клеток, но иногда они образуются как выросты последних, выполняя только функцию продуцирования спор. Специализированные спорангии наблюдаются у представителей семейства Trentepohliacea (см. рис. 19.9). Количество спор в спорангиях колеблется от одной (Oedogonium) до нескольких сотен (Cladophora).
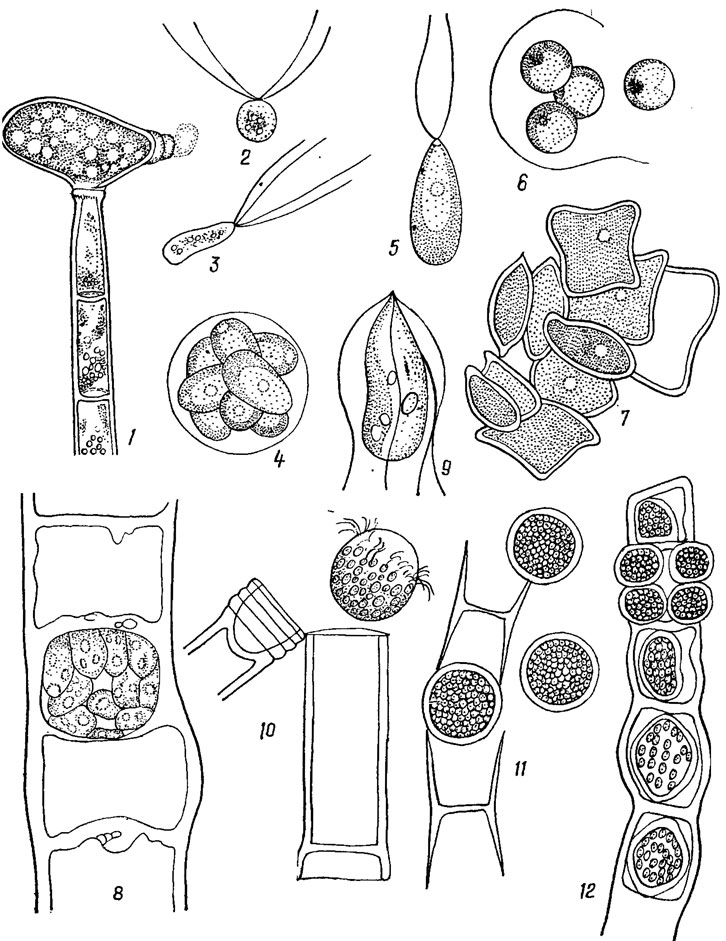
Рис. 19.9. Спорангии и споры зеленых водорослей: 1-3 - Trentepohiia annuiata Brand (1 - участок нити с субспорангиальной клеткой и зрелым спорангием на вершине; 2, 3 - зооспоры); 4, 5 - Chiorococcum sp. (4 - спорангий, 5 - зооспора); 6 - Chloreiia sp. (освобождение автоспор из спорангия); 7 - Tetraedron minimum (A. Br.) Hansg. (освобождение автоспор); 8, 9 - Uiothrix zonata (Web. et Moh.) Kütz. (8 - спорангий, 9 - зооспора); 10 - Oedogonium concatenatum (Hass ) Wittr. (выход зооспоры из спорангия); 11 - Microspore willeana Lagerh. (освобождение апланоспор); 12 - Ulothrix sp. (образование гипноспор)
Половой процесс представлен разнообразными формами: гологамией (Dunaliella, Asteromonas Artary), изогамией (Chlamydomonas moewusii Gerloff), гетерогамией (Eudorina unicocca G. Sm.) оогамией (Volvox), конъюгацией (Conjugatophyceae). Наблюдаются формы полового процесса, промежуточные между изо- и гетерогамией (Draparnaldiella Meyer et Skabitsch.), гетеро- и оогамией (Aphanochaete А. Вr.). Наличие различных форм полового процесса (изо-, гетеро- и оогамии) в пределах одного рода Chlamydomonas свидетельствует о том, что эволюция его происходила независимо от морфологической эволюции. В строении гамет, особенно их жгутикового аппарата, наблюдается разнообразие, отмеченное для спор и монадных форм. Половые органы одноклеточные, морфологически не отличающиеся (Cladophora) или отличающиеся (Coleochaete) от вегетативных клеток. Лишь у видов рода Draparnaldiella отмечены многокамерные гаметангии [217]. Образования, рассматриваемые ранее как многоклеточные половые органы Charophyceae, трактуются ныне как сильно редуцированные гаметофиты, развивающиеся из прорастающих in situ (в микро- и макроспорангиях - инициальных клетках антеридиев и оогониев)