



Клетка водорослей (Т. В. Седова)
Клетка - основная структурная единица тела водорослей, представленных либо одноклеточными, либо многоклеточными формами. Совершенно уникальную группу составляют сифоновые водоросли: у них талломы не поделены на клетки, однако в цикле развития имеются одноклеточные стадии. Вполне очевидно, что клетка и здесь сохраняет свое значение как основной элемент, развитие и дифференциация которого приводят к формированию необычного слоевища.
Особенность одноклеточных форм определяется тем, что здесь организм состоит всего из одной клетки, поэтому в ее строении и физиологии сочетаются клеточные и организменные
черты. Это наложило отпечаток на характер изменчивости одноклеточных форм, наследование признаков, образование популяций и т. д. Представляя собой автономную систему, обладающую способностью к росту и самовоспроизведению, мелкая, не видимая простым глазом одноклеточная водоросль выполняет роль своеобразной фабрики, которая добывает сырье (поглощает из окружающей среды растворы минеральных солей и углекислоты), его перерабатывает и производит такие ценные соединения, как белки, углеводы и жиры. Кроме того, важным продуктом ее деятельности считается кислород. Таким образом, она активно участвует в круговороте веществ в природе. Одноклеточные водоросли иногда образуют временные или постоянные скопления в виде ценобиев и колоний.
Многоклеточные формы возникли после того, как клетка проделала длительный и сложный путь развития в качестве самостоятельного организма. В современных растениях сохранились следы этой истории. Переход от одноклеточного к многоклеточному состоянию сопровождался потерей индивидуальности и связанными с этим изменениями в структуре и функциях клетки. Внутри талломов многоклеточных водорослей складываются качественно иные отношения, чем между клетками одноклеточных водорослей. С возникновением многоклеточности связаны дифференцировка и специализация клеток в талломе, что следует рассматривать как первый шаг на пути становления тканей (гистогенез) и органов (органогенез). В зависимости от расположения клеток в талломе многоклеточные водоросли могут быть представлены нитчатыми или пластинчатыми формами.
Несмотря на более чем 300-летнюю историю изучения, клетка до сих пор не раскрыла всех своих тайн, так как "сцена", на которой здесь разыгрываются события, имеет микроскопические размеры, а действующие "герои" измеряются микрометрами и ангстремами. Этот миниатюрный, труднодоступный мир сказочно красив и удивительно гармоничен. Прижизненные наблюдения дают самые общие представления о клетке и ее строении. Для выявления деталей приходится прибегать к специальной обработке материала (фиксации, окрашиванию, удалению воды) и только после этого приступать к изучению в световом или электронном микроскопе (рис. 2).
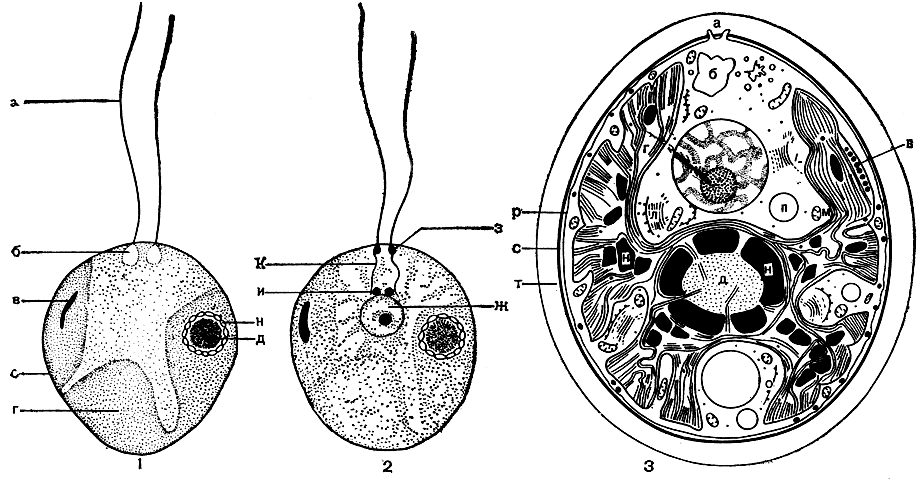
Рис. 2. Схематическое изображение клеточной организации одноклеточных зеленых подвижных водорослей при разных методах исследований: 1 - в прижизненном состоянии (световой микроскоп); 2 - после фиксации и окрашивания (световой микроскоп); 3 - по данным электронной микроскопии: а - жгутики, б - пульсирующие вакуоли, в - стигма, г - лопастной постенный хлоропласт, д - пиреноид, ж - ядро с ядрышком в центре, з - базальные тела, и - центриоль, к - ризопласты, л - диктиосома, м - митохондрии, н - крахмальные зерна, о - эндоплазматическая сеть, п - вакуоля, р - плазмалемма, с - оболочка, т - слизистая капсула
Даже при беглом знакомстве с водорослями бросается в глаза чрезвычайное разнообразие как формы (шаровидные, грушевидные, яйцевидные, веретеновидные, спиралевидные, дисковидные, бочонковидные, цилиндрические и сложные, не поддающиеся краткому описанию), так и размеров (всего от долей микрометра, как у сине-зеленых, до нескольких десятков сантиметров, как у харовых) их клеток. Наибольшая пестрота картин обнаруживается у свободноживущих одноклеточных водорослей.
У водорослей, в отличие от высших растений, встречаются клетки, содержимое которых (протопласт) окружено лишь тонкой, порядка 100 Å, пограничной мембраной (плазмалеммой). Такие клетки обычно называют голыми. Они не способны сохранять свою форму и постоянно находятся в метаболирующем, амебоидном состоянии. Подобного рода клетки встречаются как среди одноклеточных, так и многоклеточных водорослей, чаще всего на стадии гамет и зооспор.
Клетки некоторых водорослей (эвгленовых, перидиней, желто-зеленых), помимо плазмалеммы, окружены кожистым, эластичным слоем, толщина которого колеблется от 80 до 250 Å. Этот слой получил название пелликулы, или перипласта. Он состоит из фибриллярного вещества, в основном полисахаридной природы (главным образом из пектоз) и имеет сложную, многослойную организацию. Клетки с тонкой пелликулой обычно очень изменчивы по форме. Только толстая, похожая на панцирь пелликула может прочно ее зафиксировать. На поверхности пелликулы иногда возникают складки, выросты в виде зубцов или утолщения, называемые чешуйками. Эти структуры в различных сочетаниях образуют самые причудливые узоры, придавая организму неповторимый облик. Но главная их функция - повышение прочности клеточного покрова.
У представителей своеобразной группы кокколитофорид, входящих в состав золотистых водорослей, пелликула снаружи окружена дополнительным слоем округлых известковых телец - кокколитов. Они лежат в слизи, выделяемой протопластом.
Иногда в пелликуле обнаруживаются особые структуры в виде блях или шестиугольников, получившие название трихоцист. Обладая способностью скручиваться и раскручиваться, нити трихоцист при определенных условиях могут мгновенно распрямляться, "выстреливая" наружу. Предполагают, что трихоцисты выполняют в клетке защитную функцию и, может быть, даже участвуют в ее передвижении.
Еще более прочным, чем пелликула, оказался клеточный покров в виде теки. У некоторых вольвоксовых и хризомонад тека напоминает причудливой формы домик, в котором находится клетка. Она лежит там свободно, занимая только часть пространства (рис. 69, 3, 4; 195, 196). В структурном отношении тека - сложный мембранный комплекс, а по химическому составу представляет собой углеводное соединение, в основном состоящее из галактозы, галактуроновой кислоты и арабинозы. Часто, например, у перидиниевых водорослей, на наружном слое теки появляются шестиугольной формы пластинки, покрытые множеством мелких шипиков, бородавочек и других выростов. Пластинки располагаются в строгом порядке, срастаются своими краями и минерализуются, образуя сооружение, напоминающее панцирь. В месте срастания пластинок возникают швы - единственные участки поверхности, сохранившие способность к росту. В теке имеются поры, которые служат для циркуляции веществ между клеткой и внешней средой, для выхода наружу жгутиков и трихоцист.
В делении клетки тека не участвует. Обычно возникающие внутри ее дочерние клетки (или только одна из них) выходят наружу и образуют новую теку.
Важным событием, во многом предопределившим судьбу всего последующего развития растительной клетки, следует признать появление на ее поверхности покрова в виде оболочки - сначала пектиновой, а затем и целлюлозной природы. Преимущество этого образования состоит в том, что оно удачно сочетает защитную и опорную функции с возможностью ростовых процессов и проницаемостью.
Клеточные оболочки водорослей весьма разнообразны как по своему строению, так и по химическому составу. Толщина оболочки варьирует не только от вида к виду, но даже в пределах одного вида в зависимости от возраста клетки, ее функционального состояния и условий окружающей среды. Как правило, покоящиеся клетки имеют более толстые оболочки по сравнению с репродуктивными или молодыми вегетативными клетками (у зигнемы, например, они соответственно равны 1,6 и 0,8 мкм). Оболочки значительно утолщаются при дефиците влаги.
У подавляющего большинства водорослей оболочки оказываются сплошными, хотя, как у желто-зеленых, десмидиевых и диатомовых, встречаются и составные, слагающиеся из двух и более частей.
По времени заложения и особенностям роста различают первичные и вторичные оболочки (рис. 3, 2, 3). В активно делящихся клетках обычно образуется только первичная оболочка. Ее рост идет в двух направлениях: увеличивается преимущественно поверхность и в меньшей мере толщина. Переход клеток к покоящемуся состоянию сопровождается заложением снаружи от плазмалеммы вторичной оболочки, которая растет главным образом в толщину, отодвигает первичную оболочку от протопласта и вскоре становится преобладающей (рис. 3, 3). Она придает клетке прочность и окончательную форму. При возобновлении в клетке ростовых процессов вторичная оболочка подвергается гидратации, становится эластичной и получает возможность растягиваться.
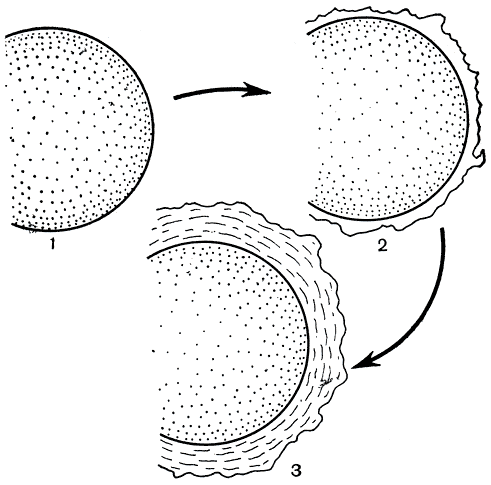
Рис. 3. Последовательные этапы формирования клеточной оболочки: 1 - молодая вегетативная клетка, лишенная оболочки; 2 - заложение первичной оболочки; 3 - появление под ней вторичной оболочки
На долю оболочки в среднем приходится 13-15% сухой массы клетки. У гидродиктиона, например, этот показатель еще выше и равен приблизительно 39%, при этом жиры составляют 7,2%, а остальное - белки и углеводы. Таким образом, белково-углеводный комплекс является основой оболочки, причем у водорослей соотношение этих компонентов колеблется в очень широких пределах (у сине-зеленых водорослей они представлены в одинаковой пропорции, а у хламидомонад отмечается сдвиг в сторону увеличения белков). Помимо этого, обращает на себя внимание разнообразный состав полисахаридов. В частности, у хламидомонады они образованы галактозами, арабинозами, в меньшей мере - ксилозами и рамнозами; у ацетабулярии - маннозами, глюкозами, галактозами и рамнозами; у ооцистиса - глюкозами, а галактозы, арабинозы и другие находятся в виде следов; у валонии - исключительно глюкозами. Создается впечатление, что природа решила поставить на водорослях грандиозный эксперимент по выявлению из множества полисахаридов того, который лучше всего подходил бы в качестве материала клеточных оболочек.
Даже при беглом взгляде бросается в глаза неоднородность, слоистость оболочки водорослевой клетки. Слои отличаются друг от друга по толщине, плотности и даже по химическому составу. Как правило, внутренние слои оказываются целлюлозными, а наружный - пектиновым. Он надежно защищает клетку от губительного влияния кислот и других столь же сильных реагентов (конечно, если это воздействие не будет слишком долгим).
Изучение оболочки водорослевых клеток в электронном микроскопе расширило наши представления относительно ее организации. Оболочка у подавляющего большинства видов оказалась двухкомпонентной системой, состоящей из аморфного основного вещества (стромы) и погруженных в него фибрилл целлюлозной природы с сечением 200 - 300 Å, которые выполняют роль опорного элемента и повышают прочность всей конструкции (рис. 4, 1, 2, 3).
Общее количество фибрилл и характер их ориентации варьируют не только в зависимости от формы клетки, но и от слоя к слою в пределах одной и той же клетки. Все попытки найти этому объяснение, исходя из теории механических напряжений, окончились неудачно, поскольку не учитывались "творческие способности" самой клетки, живущей по биологическим законам.
Изучение оболочек на ультраструктурном уровне позволяет произвести и более точное расчленение оболочек на слои. В большинстве случаев их не больше двух-трех, но бывают и отклонения. У сине-зеленых водорослей оболочка, как правило, четырехслойная, причем у осциллатории все слои одинаковой толщины (100 Å), а у анабены существуют различия, и весьма значительные (I -100 Å; II - 140 Å; III - 150-300 Å; IV - 140 Å). Многослойные оболочки обнаружены у десмидиевых водорослей. Однако не у всех водорослей слоистость оболочки выявляется четко, что, вероятно, служит причиной появления порой весьма противоречивых данных. Так, одни исследователи сообщают о существовании у ценобиальной зеленой водоросли сценедесмус всего двух слоев, а другие - трех.
Отсутствие целлюлозы делает оболочки гомогенными, что нередко наблюдается у вольвоксовых (гематококк, вольвокс), улотриксовых (спонгоморфа, акросифония), сифоновых (кодиум).
Иногда там, где фибриллярный компонент отсутствует или развит очень слабо, оболочки интенсивно пропитываются (инкрустируются) находящимся в среде раствором солей железа (у вольвоксовых), кальция (у харовых) или кремния (у диатомовых), которые укрепляют матрикс, создавая нередко структуру, похожую на панцирь. Соли, как известно, в отличие от целлюлозы, упорядочиваются не в линейные, а в трехмерные структуры, что делает оболочку необычайно красиво орнаментированной. Нередко оболочки пропитываются органическими соединениями, из которых самыми распространенными являются лигнин и кутин, секретируемые протопластом клетки. Причем кутин выполняет, помимо опорной, еще и защитную функцию, поскольку задерживает губительные ультрафиолетовые лучи и предохраняет клетку от излишней потери воды, тем самым улучшая условия транспирации.
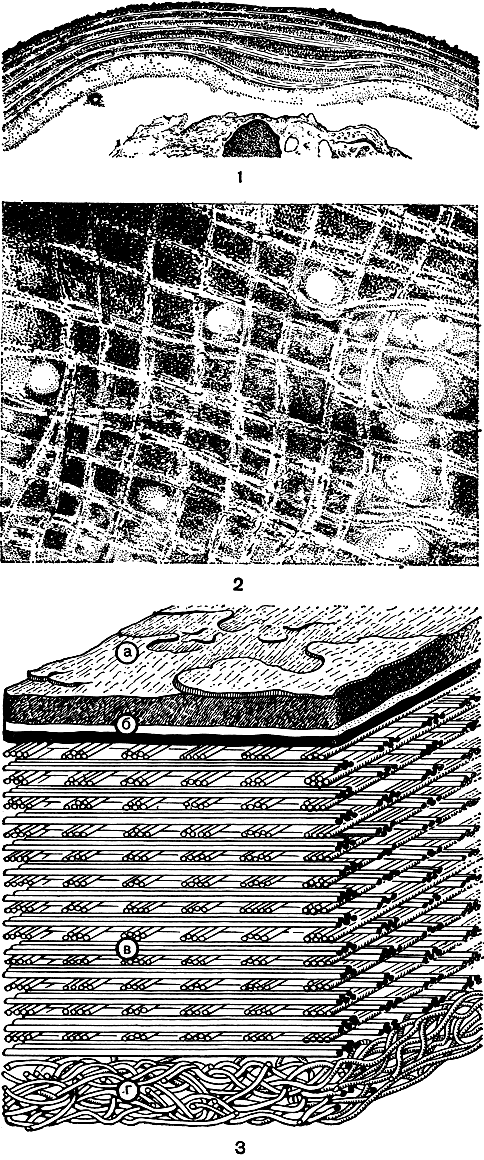
Рис. 4. Организация клеточной оболочки по данным электронной микроскопии: 1 - многослойная оболочка Glaucocystis nostochinearum; 2 - расположение целлюлозных фибрилл в оболочке Pyrocystis lunula; 3 - модель строения оболочки: а - внешняя часть наружного слоя, б, в, г - внутренний слой оболочки с разным характером упорядоченности целлюлозных фибрилл
От инкрустации следует отличать процесс адкрустации, под которым понимают скопление вещества на поверхности клетки. Так, кутин, выделяясь наружу, затвердевает и образует кутикулу. Подобного рода образование возникает на вегетативных клетках у порфиры, на оогониях у эдогониума, на эпидермальных клетках у многих бурых водорослей.
К адкрустирующим веществам относятся и всевозможные слизи. У некоторых сине-зеленых водорослей слизистый слой, называемый здесь влагалищем, бывает довольно массивным, порядка 0,5-1,0 мкм. Мощная слизистая капсула появляется у многих одноклеточных зеленых водорослей (пальмелла, диктиосфериум, факотус), десмидиевых и в других группах. Она, очевидно, способствует созданию вокруг клетки своеобразного микроклимата. Слизь представляет собой продукт жизнедеятельности оболочки и по своей природе может быть либо пектиновой, либо целлюлозной. От постоянных слизистых форм следует отличать организмы с временно ослизняющимися, как у хламидомонад, оболочками. О таких водорослях обычно говорят, что они находятся в пальмеллевидном состоянии, которое, по всей вероятности, помогает им переживать всевозможные неблагоприятные условия.
У красных водорослей на поверхности оболочки откладываются в большом количестве сульфированные полисахариды, образующие вокруг клетки мощную капсулу. Поскольку эти полисахариды водорастворимы, то их отложение идет непрерывно. Из подобного рода соединений получают ценный продукт агар-агар, который находит широкое применение, в частности, в кондитерской промышленности.
Выделения протопласта поступают на поверхность клетки через особые отверстия в оболочке - поры. Их диаметр у десмидиевых равен приблизительно 120-200 Å, у фукуса - 370 Å, у осциллатории - 300-600 Å, иногда и до 900 Å. В среднем на 1 мкм2 поверхности приходится до 20-30 пор. Они размещаются рав-номерно или группами. Если у одноклеточных водорослей благодаря порам устанавливается прямая связь протопласта с внешним миром, то у многоклеточных через поры на внутренних стенках - и с соседними клетками таллома. Иногда через эти поры беспрепятственно проходят цитоплазматические тяжи (плазмодесмы) (рис. 5, 1). Они, по сути, связывают протопласты всех клеток таллома в единое целое и обеспечивают однозначную реакцию многоклеточного организма на изменения в окружающей среде. Не случайно именно у тех водорослей, у которых существуют подобного рода межклеточные коммуникации, можно иногда наблюдать почти фантастическую картину, как, точно по мановению дирижерской палочки, все клетки нити одновременно приступают к образованию то акинет, то зооспор.
Сравнительное изучение особенностей заложения, развития и строения пор показало, что они различаются по происхождению: одни возникают в ходе клеточного деления, как результат неполного срастания перегородки, другие образуются энзиматически, путем разрушения оболочки. Впоследствии поры могут закупориваться пробкой, как это нередко наблюдается у сине-зеленых (в особых клетках - гетероцистах, о которых рассказано ниже) и красных водорослей (рис. 5, 2).
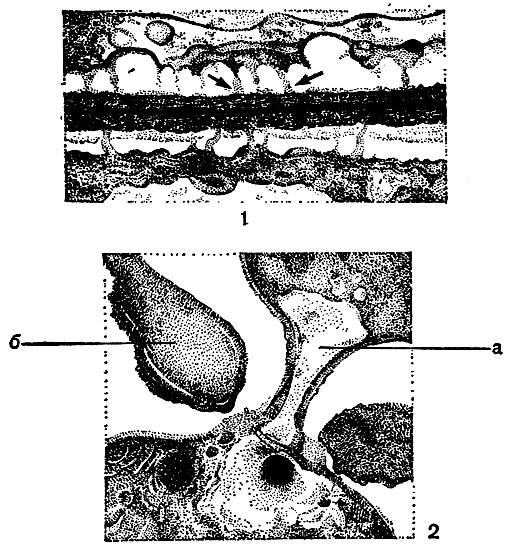
Рис. 5. Строение плазмодесм и гетероцист: 1 - плазмодесмы в оболочках зеленой водоросли Coleochaete (показаны стрелкой); 2 - продольный срез через гетероцисту сине-зеленой водоросли Anabaena azollae: а - пробка, б - полярное утолщение оболочки гетероцисты
Помимо пор, оболочки многих водорослей снабжаются различного рода выростами в виде щетинок, шипиков и чешуек. Их роль для клетки неоднозначна: в одних случаях они выполняют, очевидно, защитную функцию, а в других обеспечивают оптимальные условия жизни, например поддерживают организмы в состоянии парения.
В протопласте любой клетки различают два тесно связанных друг с другом компонента: ядро (карион, или нуклеус, что в переводе соответственно с греческого и латинского означает "ядро") и цитоплазму, причем от степени их развития зависит уровень организации клетки в целом. Водоросли - единственная группа растений, где представлены все известные в настоящее время типы клеточной организации: прокариотическая - у сине-зеленых водорослей, мезокариотическая - у панцирных жгутиконосцев из группы динофлагеллат, эукариотическая - у водорослей остальных отделов.
У прокариот отсутствует морфологически оформленное ядро, а его функции выполняет состоящий из микрофибрилл ДНК нуклеоид, который, несмотря на примитивность своей организации, не только содержит, но и точно передает из поколения в поколение всю генетическую информацию о клетке. Более того, прокариоты лишены и многих типичных плазматических органелл (хлоропластов, митохондрий, диктиосом), но зато снабжены многочисленными и разнообразными как по форме, так и по составу включениями.
Мезокариоты уже обладают четко дифференцированным ядром, однако в его строении и поведении сохранились некоторые черты примитивности, присущие нуклеоиду. Подобная двойственность проявляется и в других чертах организации клетки, что позволяет говорить о промежуточном положении этих организмов между примитивными прокариотами и достигшими в целом наиболее высокого уровня развития эукариотами.
У большинства водорослей в клетке присутствует всего одно ядро, но известны случаи, когда их бывает два-три и больше. Клетки с несколькими десятками, как у кладофоры, или сотнями, как у водяной сеточки (гидродиктион), ядер называют ценоцитными. Примечательно, что эти водоросли возвращаются к одноядерному состоянию при образовании специализированных клеток бесполого (апланоспоры, зооспоры) и полового (гаметы) размножения.
Форма, размеры и местоположение ядра в клетке сильно варьируют у разных водорослей, а также в зависимости от фазы развития, на которой находится тот или иной организм.
Очень мелкие ядра (диаметром 1-3 мкм) характерны для подавляющего большинства одноклеточных водорослей, хотя и здесь встречаются такие "рекордсмены", как гематококк (10 мкм), гимнодиниум (12-16 мкм), вольвокс (13-17 мкм), эремосфера (25-30 мкм). У многоклеточных водорослей наряду с мелкими ядрами (1,5-2,5 мкм у улотрикса, 2,5-3,5 мкм у стигеоклониума, 2,0-4,0 у уронемы) попадаются крупные (35-57 мкм у некоторых видов спирогиры) и даже такие гигантские, как у ацетабулярии (1,7мм).
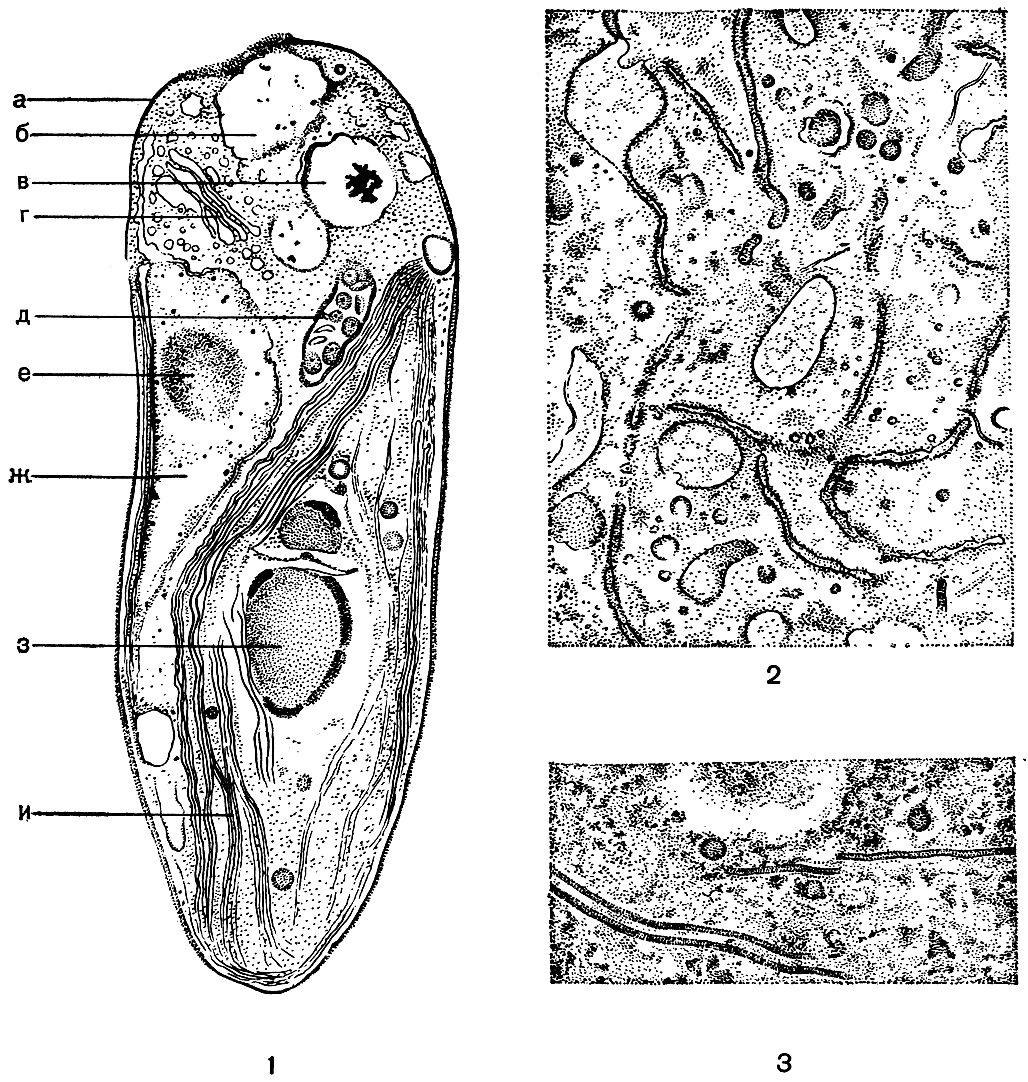
Рис. 6. Ультратонкое строение клетки: 1 - продольный срез через клетку одноклеточной зеленой водоросли Pedinomonas minor (электронный микроскоп): а - плазмалемма, б - пульсирующая вакуоля, в - статическая вакуоля, г - диктиосома, д - митохондрия, е - ядрышко, ж - окруженное двухмембранной оболочкой ядро с ядрышком, з - пиреноид с крахмальной обкладкой, и - хлоропласт с пучком ламелл; 2 - эндоплазматическая сеть в цитоплазме клетки спирогиры; 3 - микротрубочки в цитоплазме клетки спирогиры
Размеры ядер даже в пределах одного таллома могут существенно колебаться. Так, у одного вида бриопсиса (Bryopsis halymeniae) из сифоновых ядра спорангия имеют диаметр, равный 30-45 мкм, а ядра вегетативных клеток таллома - 3,0-4,5 мкм. У другого вида бриопсиса (Bryopsis hypnoides) ядра в проростке зиготы оказываются крупнее ядра зиготы почти в 1700 раз. У водяной сеточки в молодых клетках ядра не превышают в диаметре 2,8 мкм, а в старых иногда достигают 16 мкм. Интересно, что перед делением диаметр ядер обычно увеличивается более чем в 2 раза. В этот же период происходит и его перемещение, как правило, в центр (эдогониум) или в переднюю часть клетки (эвглена).
В ядре у водорослей выявлены те же самые структуры, что и в ядрах других эукариотов: оболочка, ядерный сок (нуклеоплазма, кариоплазма, кариолимфа), ядрышко (нуклеолус), включения хроматина.
Оболочка ядра состоит из двух мембран (внутренней и наружной) и имеет поры (рис. 6, 1 ж). Толщина оболочки, например, у хлореллы (Chlorella pyrenoidosa) равна 300-450 Å, у клостериума (Closterium ehrenbergii) - 200-300 Å, у ацетабулярии (Acetabularia mediterranea) - 200 Å. Диаметр пор у клостериума Эренберга составляет 700 Å, у ацетабулярии - 800 Å. Наличие пор обусловливает высокую проницаемость оболочки ядра и способствует свободному прохождению через нее крупных макромолекул. Однако оболочка обладает очень высокой избирательностью и пропускает через себя далеко не все из них. Поэтому не следует представлять ее в виде решета, которое чисто механически отсеивает все то, что не соответствует размеру его отверстий. В силу этого о проницаемости оболочки приходится говорить как о биологическом процессе, проходящем при непосредственном участии самой структуры.
Сильные преобразования претерпевает оболочка ядра во время ядерного деления, которое часто, хотя и не всегда, сопровождается сначала ее фрагментацией, а затем и полным распадением.
Все внутреннее пространство ядра заполнено (рис. 7, 1-6) ядерным соком, в котором, помимо ядрышка, удается различить хроматиновые структуры в виде скрученных нитей и глыбок; самые крупные глыбки иногда называют хромоцентрами, кариосомами или ложными ядрышками по чисто морфологическому сходству с последними. Теперь считают, что хроматиновые нити не что иное, как форма существования хромосом в покоящемся ядре, а хромоцентры - их более плотные участки. Обычно хроматин скапливается вдоль оболочки; остальная же часть ядра выглядит почти гомогенной, поскольку там лишь иногда удается обнаружить структуру в виде нежной сеточки с гранулами в ее узлах. Только у очень немногих водорослей (эвглена, кладофора) хроматиновые образования распределяются по всему ядру более или менее равномерно, маскируя его содержимое (рис. 7, 5, 6).
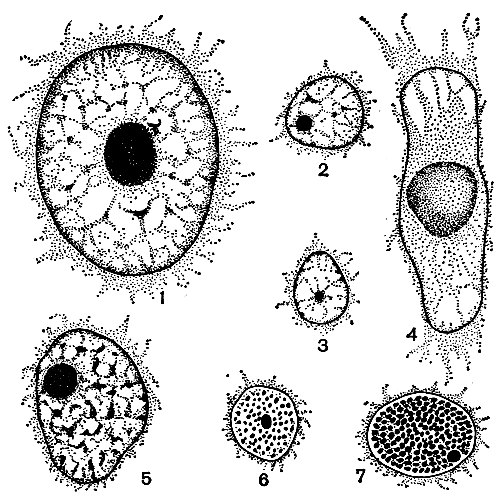
Рис. 7. Интерфазные ядра клеток у разных водорослей: 1 - Microspore; 2 - Chlamydomonas; 3 - Hydrodictyon; 4 - Spirogyra; 5 - Cladophora; 6 - Colacium; 7 - Glenodinium
Переход ядер к делению сопровождается усилением спирализации, укорачиванием, а затем и формированием морфологически четко выраженных хромосом. Исключение составляют мезокариотные водоросли: у них хромосомы находятся постоянно в конденсирован-ном состоянии и поэтому всегда хорошо видны (рис. 7, 7).
Хромосомы ядра в совокупности составляют хромосомный набор. Каждый вид организмов имеет свой набор строго определенных по форме, размерам и количеству хромосом (кариотип). Он служит своего рода паспортом, куда занесены в зашифрованном виде все основные исходные данные об организме. Их расшифровка сопряжена с большими трудностями, и здесь предстоит еще очень большая работа. У водорослей в подавляющем большинстве случаев хромосомы очень мелкие, без перетяжек, и имеют вид точек или палочек. В пределах одного набора они, как правило, выглядят все "на одно лицо", поэтому изучать их бывает очень трудно (рис. 8, 1-7).
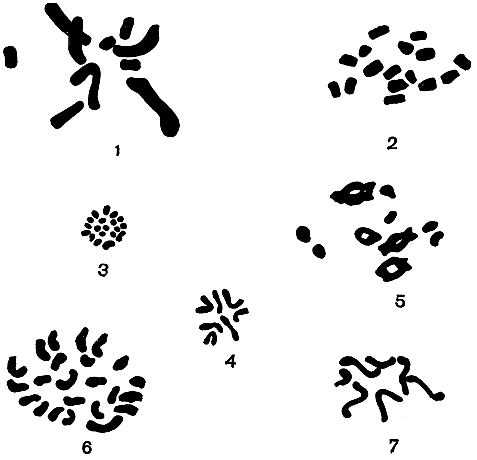
Рис. 8. Хромосомные наборы у разных водорослей: 1 - улотрикс (n = 10); 2 - микроспора ( n = 16); 3 - гидродиктион (n = 19); 4 - эвдорина (n = 7); 5 - ульва (n = 10); 6 - трентеполия (n = 24); 7 - вольвулина (n = 7)
Каждое ядро обычно содержит одно, но иногда и большее количество ядрышек. Обычно они бывают диаметром 1-2 мкм, хотя встречаются и более крупные. Например, у спирогиры (Spirogyra neglecta) они достигают 11-14 мкм. Ядрышки состоят из очень плотного вещества и лишены мембранного барьера. В них, в отличие от хроматина, скапливается не ДНК, а РНК. Во время ядерного деления ядрышки претерпевают циклические преобразования, связанные с разрыхлением, потерей красящей способности и диспергированием (рассеиванием) во время первой стадии ядерного деления (профазы) и конденсацией, восстановлением красящей способности с полной реконструкцией своего облика к концу этого процесса (в телофазе).
Однако среди водорослей встречаются отдельные группы, где имеются отклонения от подобной схемы, которая признается классической, поскольку присуща подавляющему большинству организмов не только растительного происхождения. Здесь в первую очередь следует назвать эвгленовые водоросли, где ядрышко делится без предварительного разрыхления путем гантелевидной перетяжки на два дочерних (рис. 199). Несколько иначе ведут себя ядрышки у спирогир: они в той или иной степени разрыхляются, слегка диспергируются, но не теряют при этом своей красящей способности. В результате ядро оказывается заполненным так называемым ядрышковым веществом, ко-торое очень затрудняет наблюдение за ходом ядерного деления, часто маскируя его детали.
Совокупность всех преобразований, связанных с делением ядра, составляет митотический цикл, или митоз. У водорослей, как и у других растений, реорганизация ядра следует в строгой последовательности в несколько этапов (фаз). Всего различают 5 фаз: интерфаза, или состояние покоя (самая продолжительная по времени), профаза, метафаза, анафаза и телофаза. Из телофазы ядро снова переходит в интерфазу.
Второй компонент клетки - цитоплазма - состоит из гомогенного основного вещества (стромы) и погруженных в него телец (органелл) различного размера и формы: митохондрий, диктиосом, эндоплазматической сети и т.